IX. Biologie


Introduction
Un des défis dans la réalisation de clipedia-txt.net est la structuration de la matière, de façon "logico-historique", par un sommaire numéroté, composé de chapitres, sections et sous-sections. Ce défi est d'autant plus complexe que clipedia.be – la source des vidéos – vit sa propre histoire, marquée par une rotation assez rapide des chercheurs qui composent l'équipe autour de Marc Haelterman. Il en résulte – particulièrement dans les domaines de la biologie et de la chimie – des redondances, et probablement des niveaux différents dans la présentation de la matière. Mais les répétitions ont généralement pour effet d'améliorer l'intériorisation de la matière par l'étudiant, notamment lorsqu'elles sont le fait d'auteurs différents, combinant ainsi des éclairages complémentaires. Bonne lecture !

La plupart des éléments qui nous entourent ne sont pas vivants, et la Terre est, à ce jour, la seule planète connue à abriter la vie. Les êtres vivants sont constitués de matière, mais contrairement à la matière non vivante, comme les roches, ils naissent, grandissent, se reproduisent et meurent.
La matière – vivante comme non vivante – est composée d'atomes, liés par des forces d'attraction. Il est constitué d'un noyau lui-même composé de protons (charges positives) et de neutrons (charges nulles), et entouré d'un nuage d'électrons (charges négatives). Les atomes sont des constituants fondamentaux de la matière ordinaire. Ils peuvent s'associer pour former des molécules. Ainsi la molécule d'eau (H2O) est composée de deux atomes d'hydrogène et d'un atome d'oxygène.
La structure infra-atomique relève principalement de la physique nucléaire et de la physique des particules. La chimie étudie notamment les atomes, les molécules et leurs transformations.
La biologie étudie la dimension matérielle du vivant. Les questions liées à la conscience (sensations, envies, ...) relèvent plutôt de la psychologie et de la philosophie.
Ainsi la grenouille qui a chaud, ressent l'envie de plonger dans la mare ou de se mettre à l'ombre. Si elle a faim, elle a envie de manger, par exemple une sauterelle (N.d.A. La biologie étudie aussi le comportement, les mécanismes neuronaux, la perception et les bases biologiques de la conscience. La psychologie et la philosophie abordent ces questions sous d'autres angles).
Tous les organismes vivants sont composés de cellules. Ces cellules contiennent de l’eau et diverses molécules biologiques. On distingue quatre grandes classes de molécules biologiques :
- les glucides, principale source d’énergie immédiate pour les cellules :
- les lipides, réserve d’énergie, constituants des membranes cellulaires et molécules de signalisation. :
- les protéines, molécules constituées d’acides aminés, assurant notamment des fonctions structurales, enzymatiques et de transport :
- les acides nucléiques : ADN et ARN, impliqués dans le stockage, la transmission et l’expression de l’information génétique. :
Chaque molécule biologique assure une fonction particulière, et les molécules s'assemblent pour constituer des cellules, briques élémentaires du vivant, qui s'organisent et s'assemblent (en adhérant les unes aux autres) pour constituer un organisme (peau, organes, éventuel squelette, ...).
Une cellule est comme un compartiment fait d'une membrane entourant diverses structures appelées organites.
Il existe des organismes unicellulaires, comme les bactéries.
Pour fonctionner, les cellules ont besoin de matière et d’énergie (les sucres sont utilisés par les cellules pour donner de l'énergie à l'organisme). C’est pourquoi les êtres vivants doivent se nourrir. Ce besoin entraîne des interactions entre les organismes, comme la prédation ou encore la symbiose.
En mangeant une sauterelle, la grenouille digère ses protéines pour récupérer les acides aminés qui les composent et ainsi recomposer des protéines pour les cellules de la grenouille.
Certains animaux mangent d'autres animaux, et certains animaux mangent des plantes, autres organismes vivants.
Les plantes absorbent :
de la matière (nutriments) dans l'eau du sol, via leurs racines ;
de l'énergie, en l'occurrence celle de la lumière du Soleil, par un processus appelé photosynthèse.
N.d.A. Les plantes prélèvent notamment de l'eau et des ions minéraux par leurs racines, tandis que le carbone nécessaire à la fabrication de leur matière organique provient principalement du dioxyde de carbone atmosphérique, fixé lors de la photosynthèse.
Les êtres vivants se multiplient (se reproduisent), formant ainsi des populations qui évoluent dans un milieu et interagissent entre elles.
L'écosystème – qui comprend les organismes vivants d'un milieu, les relations qu'ils entretiennent entre eux (prédation, symbiose, reproduction, ...) et les interactions qu'ils ont avec leur environnement physique (par exemple une marre où s'hydrater) – est l'échelle la plus élevée des systèmes biologiques, à l'opposé de la cellule et des molécules biologiques qui la composent :
- échelle macroscopique :
- écosystème : organismes et milieu physique ;
- population : individus d'une même espèce ;
- individu : un être vivant individuel ;
- organe : ensemble de tissus assurant des fonctions ;
- échelle microscopique :
- cellule : unité fondamentale du vivant ;
- molécules biologiques : Assemblage d'atomes.
N.d.A. Les individus connaissent un cycle de vie, de leur formation à leur mort. Quant aux populations, au fil des générations, elles évoluent sous l'effet de différents mécanismes, notamment la sélection naturelle, les mutations et la dérive génétique.
Quelles sont les raisons d'étudier la biologie ?
Le phénomène par lequel les cellules animales convertissent les sucres de l'alimentation en énergie est la glycolyse. Les cellules végétales, quant à elles, utilisent la photosynthèse pour convertir l'énergie lumineuse en énergie chimique afin de fabriquer leurs propres sucres, nécessaires à leur croissance.
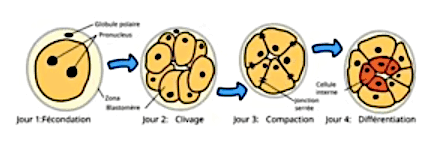
La morphogenèse étudie comment les cellules se divisent et s'organisent de manière cohérente pour former un individu structuré au cours de son développement. Comment, à partir d'une seule cellule, un fœtus se forme-t-il ? La division cellulaire transforme la cellule initiale en un amas de cellules de plus en plus grand. Ensuite certaines cellules se transforment en fonction de leur position au cours du développement de l'individu.
Évolution.
La vie serait apparue sur Terre il y a environ quatre milliards d'années, de sorte qu'il n'y a plus de trace de cet événement. Des molécules biologiques se seraient assemblées progressivement pour former les premières formes de cellules, qui ont ensuite évolué en des organismes unicellulaires puis multicellulaires.
Les grenouilles naissent d'abord sous forme de têtards, qui respirent par des branchies, puis se transforment en grenouilles, qui respirent par des poumons. Il s'agit peut être d'une trace d'évolution de la vie aquatique vers la vie terrestre.
Adaptation.
Les oreilles gigantesques du lièvre antilope, qui vit dans des régions chaudes, lui permettent de refroidir plus efficacement son corps.
La ressemblance de l'hippocampe-feuille avec une algue le protège des prédateurs.
Les plantes carnivores, qui poussent dans des sols pauvres en nutriments, trouvent ceux-ci dans les insectes qui se retrouvent piégés dans leurs mâchoires, et qu'elles digèrent alors.
Les pesticides ont pour fonction de détruire les insectes ravageurs (coléoptères, pucerons, ...), qui peuvent ravager des cultures agricoles. Un problème est que certains pesticides tuent également les insectes pollinisateurs (dont les abeilles). Il importe donc de trouver des alternatives à ces pesticides, tels que les coccinelles (qui se nourrissent de pucerons). Ainsi des scientifiques ont développé des souches de coccinelles mutantes aptères (sans ailes) pour optimiser la protection des cultures.
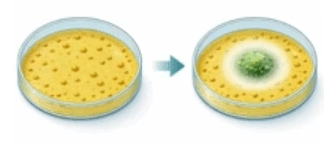
La pénicilline, premier antibiotique, fut découvert dans les années 1920 par un chercheur qui cultivait des bactéries appelées staphylocoques. Ayant contaminé par erreur une de ces boîtes de culture, il y découvrit un champignon. Or, autour de celui-ci, les bactéries ne poussaient plus ! On en a déduit que ce champignon, appelé pénicillium, produisait une substance qui tue les bactéries.
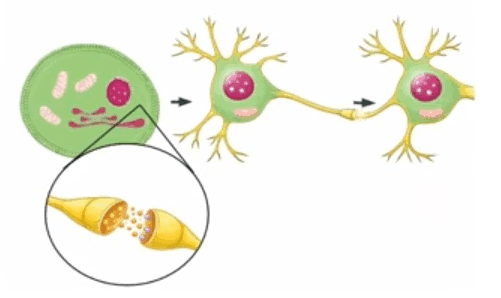
À la fin du 19e siècle on a découvert, grâce à l'observation de coupes de cerveaux de souris au microscope, que le cerveau est constitué de cellules particulières, appelées neurones, dont les membranes présentent des extensions leur permettant de communiquer entre elles en y faisant passer des molécules, appelées neurotransmetteurs. Parmi ces derniers, la dopamine joue un rôle déterminant dans la coordination des mouvements du corps. Or on s'est rendu compte que le cerveau des personnes atteintes de la maladie de Parkinson ne produit pas assez de Dopamine. On a ainsi développé des médicaments qui augmentent la quantité de dopamine dans les neurones, afin de soigner cette maladie dégénérative.
La biologie est la science qui étudie les organismes c-à-d les systèmes biologiques (nous utiliserons souvent le pléonasme "organisme vivant"). Mais comment définir objectivement la vie, c-à-d par une définition permettant de classer sans hésitation tous les corps en deux groupes "vivants" et "non-vivants".
On utilise aussi les termes de corps "animé" vs "inanimé", du latin "animare" (« donner de la vie ») et "anima" (« souffle, vie »).
L'image suivante illustre l'arbre phylogénétique de la vie, qui montre des relations de parenté entre des groupes d'êtres vivants (ancêtre commun, descendants, groupes frères, ...). Pourtant, il n'existe pas de définition unanime de ce qu'est la vie ! Dans ces conditions on ne s'étonnera pas de constater que cette représentation s'est complexifiée au gré des découvertes scientifiques et du progrès technologique (microscope optique puis électronique *), révélant une grande diversité des formes de "vie". Ainsi l'on sait aujourd'hui que les animaux et les végétaux ne constituent qu'une partie des "organismes vivants".
(*) Alors que le microscope optique exploite les photons, le microscope électronique exploite des électrons, dont la longueur d'onde est 100.000 fois inférieure à celle des photons, et permet ainsi de distinguer des organismes non discernables par les photons (dont les virus, les bactéries étant à peine discernables au microscope optique). Dans les deux cas un faisceau est envoyé, au travers de lentilles, sur le corps observé.

Les procaryotes sont divisés en deux groupes distincts (bactéries et archées). Les eucaryotes descendraient des archées. Source
N.d.A. Et si Darwin s'était trompé...
À deux reprises dans la vidéo le scientifique exprime sa satisfaction concernant le fait que les êtres vivants ont une parenté (7m02s et 7m32s). Je regrette cette démarche, non pas évidemment en raison de sa motivation humaniste (que je partage), mais parce que ces incursions idéologiques dans le discours scientifique peuvent conduire à de graves dérives au regard de la méthode scientifique, ainsi qu'à une incapacité à la remise en question.
Un exemple de remise en question est la thèse de Didier Raoult qui en 2011 déclarait (NB : en se situant dans une échelle temporelle beaucoup plus courte et récente que celle de l'arbre phylogénétique initié à LUCA) : « Pendant longtemps, on a pensé que nous descendions d'un ancêtre commun : le Sapiens. En mai 2010, coup de théâtre : les résultats d'une analyse de l'ADN prélevé sur des os de néandertaliens ont révélé que 1 à 4 % de nos gènes viennent de Néandertal. Que cela nous plaise ou non, nous sommes apparentés à ce lourdaud, et non pas uniquement à Sapiens "l'intello". Les deux se sont rencontrés et métissés. L'arbre généalogique de l'espèce humaine est anti-darwinien parce que notre ancêtre est tout à la fois Sapiens, néandertalien, une bactérie et un virus ! (...) Dans la vision darwinienne de l'évolution, tout a été créé une bonne fois pour toutes, et s'il apparaît de nouvelles espèces, c'est uniquement par adaptation graduelle des espèces existantes. En fait, la nature ne se contente pas d'évoluer, elle continue d'inventer des espèces. On s'est aperçu qu'une bactérie nommée Wolbachia avait réussi, en infectant un ver, à intégrer 80 % de son chromosome. Elle avait, de fait, fabriqué une nouvelle espèce de ver ! Une évolution brutale et massive qui n'a rien à voir avec l'évolution lente et verticale décrite par Darwin. (...) Le génome humain contient 10 à 15 % de gènes inconnus. Nous ne sommes pas là devant un phénomène d'"évolution", mais bien de "création". » [source].
Des biologistes ont proposé les trois critères suivants pour définir la nature vivante d'un organisme :
- réponse à des stimuli : capacité à réagir et s'adapter à l'environnement (exemple : les feuilles des végétaux se tournent vers la lumière) ;
- échanges avec l'environnement : notamment ingérer matière & énergie, puis évacuer des déchets ;
- reproduction autonome : existence d'ancêtres et descendants, multiplication et évolution.
Or les robots répondent à ces trois critères, ou sont en passe de le faire (ils pourraient théoriquement être programmés pour se reproduire tout en améliorant leur capacité). Faut-il en déduire que les robots sont des êtres vivants, ... ou bien que les trois critères ci-dessus ne sont pas pertinents pour définir la vie ?
N.d.A. La notion de machine biologique pourrait conduire à définir la vie comme étant « la capacité à éprouver des sentiments », et à attribuer au sentiment une définition qui ne pourrait être appliquée par une machine.
N.d.A. La définition dénommée "Lyfe" [source] a été conçue afin d'éviter une définition "Terro-centrée". Elle est composée de critères plus proches de la physique et de la chime que de la biologie :
- structure dissipative : système spatialement "auto-organisé" (apparition de symétries) via des échanges d'énergie avec le reste du monde (NB : proche des deux premiers critères de la définition précédente) ;
- autocatalyse : capacité d'un système de modifier la vitesse de réactions chimiques endogènes ;
- homéostasie : autorégulation de propriétés physico-chimiques d'un système, afin de le maintenir dans un état d'équilibre, c-à-d afin de neutraliser l'augmentation de son entropie (NB : implique les deux premiers critères de la définition précédente, ainsi, me semble-t-il, que le critère précédent ...) ;
- apprentissage : capacité à acquérir un savoir-faire.
Ces deux définitions sont finalement assez proches, sauf pour ce qui concerne leur dernier critère : ainsi l'apprentissage remplace la reproduction ...
Un virus est un acide nucléique (ARN ou ADN) entouré d'une capside de protéines. Il dispose donc de son propre matériel génétique. L'image ci-contre montre différentes formes de capsides (ces capsides sont composées d'unité protéiques ou capsomères : cf. points vert sombre dans l'image ci-contre).

Capsides (vert) entourant des acides nucléiques (bleu/rouge : ARN ou ADN).
Les capsides sont généralement incluses dans une enveloppe, dont émergent des glycoprotéines.

Capside dans son enveloppe.
On a pu vérifier expérimentalement (notamment avec la mosaïque du tabac) qu'en mélangeant de l'ARN viral et des sous-unités protéiques issus ("isolés" à partir) d'un virus, ont provoque un auto-assemblage conduisant à la création d'un virus du même type.
Cependant le virus ne dispose pas de système métabolique du carbone et de l'énergie ⇒ pas de système de Lipman (enzymes du métabolisme cellulaire, permettant de reproduire de l'ADN et de fabriquer des protéines) ⇒ il doit donc parasiter d'autres organismes pour se reproduire. L'image suivante illustre l'utilisation du métabolisme de la cellule hôte pour répliquer l'ADN viral, puis produire les protéines constituant la capside de chaque reproduction.

Cette reproduction peut prendre deux formes :
- la lyse, qui conduit à la destruction de l'hôte ;
- la lysogénie, par laquelle l'ADN viral s'insère dans le chromosome de l'hôte (N.d.A : ce qui ressemble à une mutation ...) ⇒ de nombreuses cellules des organismes vivants contiennent des gènes provenant de virus (à ADN).
Si cette cellule hôte lysogénée est alors soumise à un stress (rayons UV, ...) le virus a la capacité de se sauver en provoquant un cycle lytique (donc la mort de l'hôte) ! Cependant il arrive que la lysogénie ne soit pas réversible en lyse, ce qui explique que de nombreuses cellules contiennent des gènes provenant de virus.
La multiplication d'un virus au sein de la cellule hôte n'est pas un processus de division mais de réplication : la particule virale se décompose, puis est reconstruite en de multiples exemplaires par auto-assemblage des différents composants que la cellule fabrique sous le contrôle du génome viral [source p.56].
En raison de l'absence de capacité de reproduction autonome, le consensus scientifique est que les virus ne sont pas des organismes vivants. C'était du moins la situation jusqu'à la fin du siècle passé, car depuis lors le progrès technologique a quelque peu bousculé ce "consensus".
Les techniques de séquençages de l'ADN permettent aujourd'hui d'analyser les séquences de nucléotides qui forment les acides nucléiques ("lettres" de l'ADN) de très nombreux organismes (cf. image ci-contre).

Quant à la bio-informatique elle a permis de (i) comparer des séquences de nucléotides (NB : quand on analyse un génome, c'est sur des petits morceaux, qui doivent être recombinés pour obtenir la séquence complète) et (ii) d'établir l'arbre phylogénétique d'un virus ⇒ notamment d'observer l'évolution géographique des mutations (NB : ce qui peut avoir pour effet de faire croire que les mutations seraient plus nombreuses que par le passé, alors que ce n'est que leur recensement qui a été amélioré : ce phénomène fut particulièrement prégnant durant la crise de la covid-19).

On a ainsi pu constater que les trois branches de l'arbre phylogénétique des espèces ont une série de protéines en commun, ce qui conduit la plupart des biologistes à en conclure à l'existence d'une origine commune (N.d.A. : pourquoi n'y aurait-il qu'une seule origine : le phénomène décrit ci-dessus ne pourrait-il être le résultat d'évolutions initiées en divers lieux ...?).
En outre cette origine commune serait fondée uniquement sur l'ARN, acide nucléique pourvu de fonctions de mémorisation et de catalyse ⇒ notion de ribozyme (ARN avec activité enzymatique).
La vie se serait développée par des réactions chimiques capables de s'auto-entretenir, et de mémoriser de l'information pour pouvoir la reproduire ⇒ processus évolutif (dont acquisition d'une membrane cellulaire).
Mais une transformation a du avoir lieu, puisque tous les organismes vivants actuellement connus ont leur matériel génétique sous forme d'ADN. Une thèse est que les cellules eucaryotes (cellules à noyau) seraient issues de macro-virus dont l'usine virale (mécanisme permettant à ce type de virus de se protéger des système de défense de l'hôte) se serait transformée définitivement en noyau.
et la vie
Les virus sont partout. Ainsi dans cette photo d'une goutte d'eau de mer, les points les plus petits sont des virus (cf. ovale), le plus gros un protiste (cf. cercle), et ceux de taille intermédiaire des bactéries (cf. rectangle). Les virus jouent un rôle majeur dans le cycle du carbone océanique.

Étant donné l'omniprésence des virus, on ne s'étonnera donc pas que les êtres vivants échangent des gènes non seulement par la reproduction, mais aussi en les combinant avec ceux des virus et des bactéries. On estime ainsi qu'environ 70% du matériel génétique sur Terre serait d'origine virale. On sait aujourd'hui que 8% de l'ADN humain est constituée de vestiges de gènes transmis par des virus. Le corps humain contient ainsi dix à cent fois plus de virus que de cellules humaines.
- Donnée importante concernant le risque épidémiologique : sur 5.000 espèces recensées de ces virus, seulement 2,5% sont jugées pathogènes.
- Le corps humain contient également plus de bactéries que de cellules humaines. À lui seul, notre tube digestif contient 100 milliards de bactéries [source].
N.d.A. Alors un virus est-il un organisme vivant ou non ? Depuis la découverte, par une équipe dirigée par Didier Raoult, de virus géants (que l'on pensait être des bactéries), dont le virophage Mimivirus, capable d'infecter d'autres virus pour se répliquer, la thèse des virus incapables de se reproduire entre eux s'effondre, et les virus géants peuvent alors être considérés comme des organismes vivants. Quoi qu'il en soit, une chose est évidente : les virus, géants ou pas, sont intimement liés au processus vital.
Le vivant
Dans le tableau suivant on a rentré les fractions massiques (col. C) des quatre éléments les plus présents dans un humain moyen de 70kg (col. B) ⇒ on en déduit leur masse (col. D). L'on constate alors que ces quatre atomes représentent à eux seuls 96% de la masse corporelle (C7) !
Cependant, les atomes ayant des masses différentes, il importe de calculer également les proportions en termes de moles (cf. supra #mole). Pour ce faire on entre dans le tableur les masses molaires de ces éléments (col. E) ⇒ en divisant la col. D par la col. E on en déduit le nombre de moles (col. F) correspondant à chacun des éléments dans cet individu moyen.
Si l'on exprime alors la quantité de moles en % (fractions molaires : col. G), on constate alors un classement très différent de celui des fractions massiques (col. C) : en terme de fraction massique c'est l'oxygène qui est le plus présent (C2 : 65%), mais en fractions molaires – donc en nombre d'atomes – c'est l'hydrogène qui représente la plus grande part (G4 : 63,4%). L'explication en est que l'hydrogène, qui ne contient qu'un seul nucléon, est le plus léger des éléments.
Cette analyse de chimie quantitative illustre l'utilité de la notion de mole pour calculer le nombre d'atomes contenu dans une certaine quantité de matière.
 Vert : valeurs entrées – Tableur : ouvrir.
Un autre résultat surprenant sont les faibles pourcentages du carbone, en masse (C3 : 18%) comme en nombre d'atome (G3 : 9,5%). La raison en est que notre analyse de biochimie quantitative doit être améliorée par le calcul des fractions en résidu sec. L'analyse en résidu sec, c-à-d expurgé des atomes constitutifs de l'eau (soit H et O), se justifie par le fait que l'eau constitue une proportion considérable des organismes vivants : en moyenne 60% chez l'humain (elle varie selon le sexe et diminue avec l'âge).
C'est pourquoi la majorité des atomes qui constituent le corps humain, sont des atomes d’hydrogène et d’oxygène. Les proportions en fractions molaires – H=63% (G4) et O=26% (G2) – correspondent assez bien avec la proportion des atomes de la molécule H2O : deux oxygènes pour un hydrogène.
Pour calculer le résidu sec, on procède comme suit (cf. tableau infra) :
(1) soit 60% (C9) la fraction de masse de l'eau contenue dans le corps de 70kg ⇒ cette masse d'eau pèse 0,6*70,8=42,48kg (D9) ;
(2) or la masse molaire de l'eau (E9) est de 18g (cf. supra #mole) ⇒
(3) cette masse d'eau contient 42.480/18=2.360 moles de H2O (F9) ;
(4) or, une molécule d'eau contenant deux atomes de H et un atome de O ⇒ une mole d'eau contient par conséquent deux moles de H et une mole de O (cf. supra #mole) ⇒
(5) pour retirer de la masse du corps 2.360 moles de H2O ⇒ il faut retirer 2*2.360=4.720 moles d'hydrogène (F10) et 2.360 moles d'oxygène (F11) :
• H : 7.080-4.720=2.360 (H4)
• O : 2.876-2.360=516 (H2)
(6) on obtient alors la colonne H, qui multipliée par les masses molaires (col. E) donne les masses en résidu sec (col. I).
On constate alors que la fraction massique du carbone est passée de 18% (C3) à 50% (J3), et sa fraction molaire de 9,5% (G3) à 26,0% (K3).
 Tableur : ouvrir
minéraux
Les autres éléments constitutifs du corps humain – qualifiés de "minéraux" (tandis que C, H, O, N) sont qualifiés "d'organiques") – sont certes nettement moins présents, mais assurent néanmoins des fonctions importantes pour la constitution ou le métabolisme de l'organisme :
| Élément | Masse [%] | Masse [kg(70)] | Utilité |
|---|---|---|---|
| Ca | 1,500 | 1,05 | Ossature, dentition, régulation Ph |
| P | 1,000 | 0,7 | à compléter |
| K | 0,250 | 0,175 | Rôle des ions K+ avec ions Na+ dans influx nerveux (potentiel d'action) |
| S | 0,150 | 0,105 | à compléter |
| Na | 0,150 | 0,105 | Rôle des ions Na+ avec ions K+ dans influx nerveux |
| Cl | 0,150 | 0,105 | à compléter |
| Mg | 0,050 | 0,035 | à compléter |
| Fe | 0,006 | 0,004 | Présent dans l'hémoglobine du sang (distribuant l’oxygène des poumons vers les autres organes) et permet à l'oxygène inspiré dans les poumons de s'y fixer. |
N'apparaissent pas dans ce tableau les éléments minéraux représentant une masse inférieure à 1g par kg de poids corporel, et assumant pourtant des fonctions vitales pour l'organisme (nous approfondirons ce point dans la section consacrée au métabolisme).
Dans cette leçon, nous allons traiter de la définition, de la composition et des échelles du vivant.
On peut définir le vivant sur la base de quatre critères :
l'organisme est constitué d'au moins une cellule ;
l'organisme est l'objet d'un cycle de vie : naissance / germination ⇒ croissance ⇒ reproduction ⇒ vieillissement ⇒ mort ;
l'organisme doit consommer de l'énergie pour survivre, ce qui provoque la production de déchets ;
l'organisme réagit à son environnement (par exemple à un gradient de chaleur).
Ainsi un organisme est considéré comme vivant s'il répond à l'intégralité de ces quatre propriétés :
la bactérie, organisme unicellulaire répond à ces quatre critères ;
le virus ne constitue pas même une cellule, et ne répond pas au critère du cycle de vie (car il doit parasiter un organisme vivant pour se reproduire).
CHONPS. La matière vivante est composée d'un nombre limité d'éléments : carbone (C), hydrogène (H), oxygène (O), azote (N), phosphore (P), soufre (S).
Un organisme vivant peut être composé d'éléments non vivants, tels que l'eau, des minéraux (exemple NaCl) ou encore des os.
On appelle matière organique, de la matière non-vivante mais composant les organismes vivants. Elle est uniquement composée d'atomes de type CHONPS.
Ainsi les biomolécules – glucides, lipides, protéines et acides nucléiques – sont des molécules essentielles pour un organisme vivant :
- glucides, dont :
les sucres, qui sont des glucides rapides, tels que les sucres synthétiques monosaccharides ou disaccharides
l'amidon, qui est un glucide lent, composant principal des pommes de terre, molécule plus complexe (raison de la lenteur de son assimilation par l'organisme, qui doit pour ce faire la découper – ce qui consomme un peu d'énergie) ;
Les sucres constituent le principal apport d'énergie du vivant.
lipides (c-à-d les graisses, végétales ou animales) : matière insoluble car hydrophobe et qui :
- permet de stocker l'énergie sur le long terme (réserve en cas de disette) ;
joue un rôle hormonal important, par exemple par la production de stéroïdes.
-
peut également composer des membranes externes, car ils sont constitués :
- d'une tête hydrophile, composée de glycérol ;
- d'une double queue hydrophobe, composée de longues chaînes carbonées appelées "acides gras".
protéines :
biomolécules non stockables, de sorte que la quantité non consommée par l'organisme est rejetée (déchets) ;
- constituées d'acides aminés ;
- éléments constitutifs des muscles ;
exemples : hémoglobine (utile pour le transport de l'oxygène), insuline (permet de réguler les taux de sucres), kératine (compose ongles et cheveux) ;
- ouvrières de tout système vivant (action biochimique).
acides nucléiques (dont l'ADN) :
- détiennent le "plan de construction" de l'organisme (information génétique) ;
- composés d'un groupement phosphate, d'un groupement sucre et d'un composé azoté.
Ces biomolécules permettent ainsi de "construire" la matière vivante.
centimètre (cm) : le corps humain est composé d'un squelette et d'organes (cerveau, coeur, poumons, foie, etc.), chacun spécialisé dans une fonction particulière, et intégrés à un ou plusieurs systèmes (circulatoire, respiratoire, nerveux...).
millimètres (mm) : les organes sont composés de tissus, ensembles de cellules qui s'unissent pour former une "toile" ou une paroi. Les tissus se renouvellent (ainsi la peau se renouvelle entièrement tous les 28 jours).
micromètres (µm) : les tissus sont composés de cellules, plus petites unités organiques vivantes (elles vérifient les quatre propriétés du vivant énoncées plus haut).
nanomètres (nm) : on est ici juste en dessous de l'échelle de la vie, c'est notamment le cas des parasites des cellules que sont les virus (qui ne vérifient pas la propriété de reproduction), composés de protéines à sa surface et d'ADN en son sein.
Angström (nm/10) : l'ADN est lui-même composé d'atomes, briques élémentaires de toute matière, vivante ou non. Les atomes sont composés à 99,999 % de ... vide, en raison du gigantesque espace entre le noyau (protons et neutrons) et les électrons qui l'entourent. Ainsi les noyaux de tous les atomes composant les huit milliards d'êtres humains représentent le volume d'un ... dé à coudre !
Biomolécules
2. Protéines
3. Glucides
4. Lipides
5. Acides nucléiques
Principes généraux : polymères
Les biomolécules sont des polymères biologiques, c-à-d des macromolécules de poids très élevés, constituant des chaînes de milliers de monomères, petites unités chimiques identiques ou similaires, reliées entre elles par des liaisons covalentes. Un monomère est constitué de quelques atomes à quelques dizaines d'atomes au maximum.
Le progrès scientifique et technologique nous a permis de fabriquer des polymère artificiels, pour reproduire ou dépasser les propriétés des matériaux naturels.
| Caractéristique | Polymères naturels | Polymères synthétiques |
|---|---|---|
| Origine | Biologique (plantes, animaux, bactéries). | Artificielle (pétrole, gaz naturel, charbon). |
| Biodégradabilité | Généralement très élevée et rapide dans la nature. | Très faible (souvent plusieurs siècles pour se dégrader). |
| Structure | Souvent très complexe, précise et stéréorégulière (ex. : repliement des protéines). | Plus simple et régulière, ce qui facilite leur traitement industriel. |
| Biocompatibilité | Excellente avec les tissus vivants (souvent utilisés en médecine). | Variable (certains sont toxiques, d'autres sont conçus pour être inertes). |
| Exemples | ADN, protéines, cellulose, caoutchouc naturel. | Polyéthylène, PVC, polystyrène, nylon (plastiques). |
On distingue quatre grandes familles de biomolécules, qui sont les constituants essentiels du vivant :
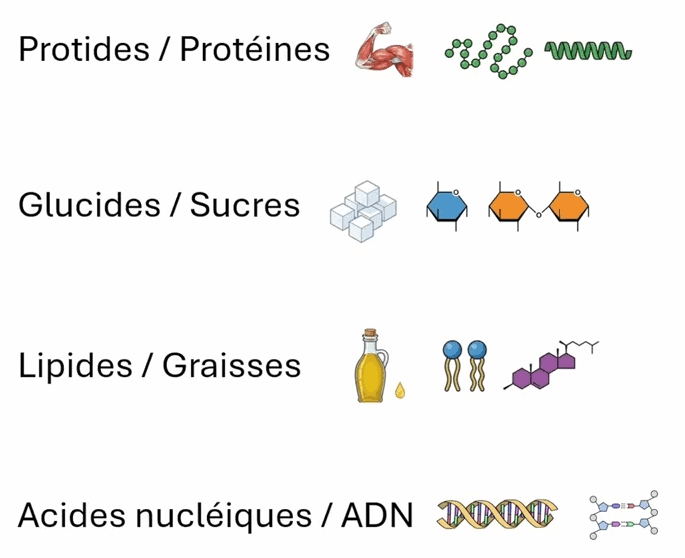
Protéines
Les monomères des protéines sont appelés acides aminés :
- "acides" car ils ont un groupement acide (ou carboxylique) ;
- "aminés" car ils ont un groupement amine (cf. schéma suivant).
N.d.A. Les termes "N-terminal" (azote) et "C-terminal" (carbone) sont réservés aux extrémités d'une protéine ou d'une chaîne polypeptidique complète. À l'échelle d'un seul acide aminé isolé, on parle de groupement acide et de groupement amine.
Ces deux groupements fonctionnels sont organisés autour d'un carbone central, auquel est rattachée une chaîne latérale (le carré), en l'occurrence un radical variable (R).
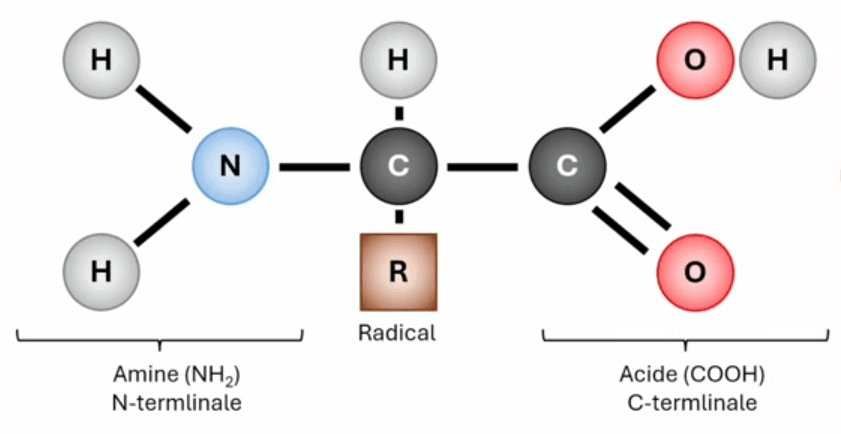
Les acides aminés sont composés des atomes de la famille CHONPS ... à l'exception du phosphore (P). Le soufre y est plus rare que les quatre autres.
Lorsque deux acides aminés sont côte à côte, ils peuvent réagir entre eux et former un lien covalent, de sorte qu'ils forment un polymère dipeptide (cf. schéma suivant). Le lien, dit peptidique, se fait entre la fonction amine de l'un (qui perd son hydrogène) et la fonction acide de l'autre (qui perd son hydroxyde), avec production d'eau.
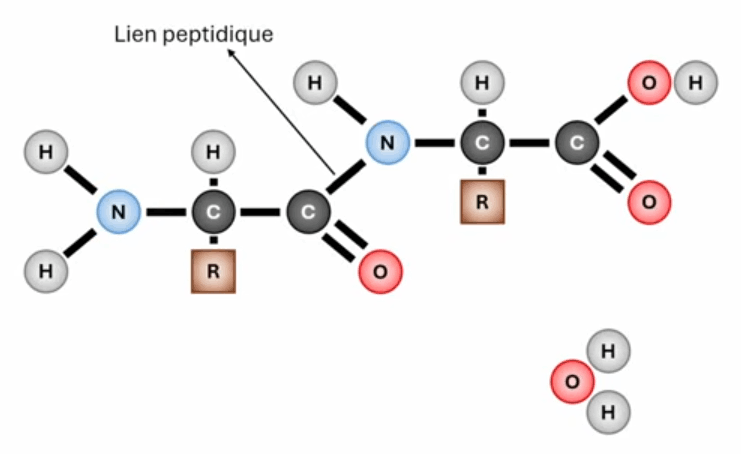
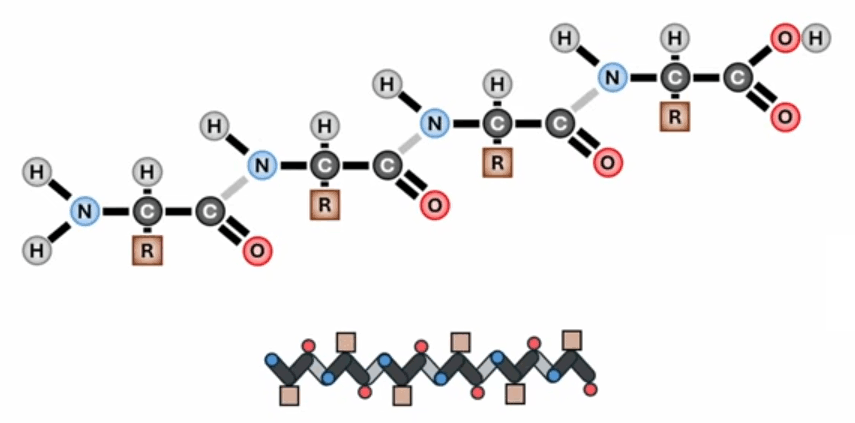
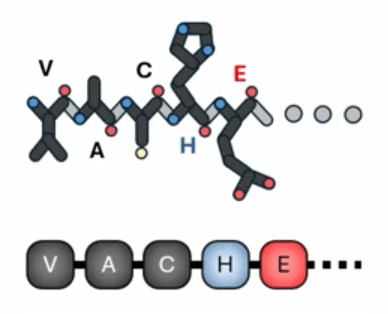
Une représentation simplifiée d'un acide aminé comportera cinq éléments :
- un module foncé en forme de V : le carbone central ;
- trait gris : lien peptidique partant du groupement carboxylate ;
- cercle rouge : groupement carboxylate ;
- cercle bleu : groupement amine ;
- carré brun : chaîne latérale.

Cette modélisation permet de mieux visualiser la structure de chaînes complexes.
Il existe 20 acides aminés, pouvant se connecter entre eux pour former des chaînes (protéines). C'est leur chaîne latérale (le radical variable R) qui les différencie. Ainsi le soufre (rond jaune) n'apparaît que dans la Cystéine et la Méthionine :
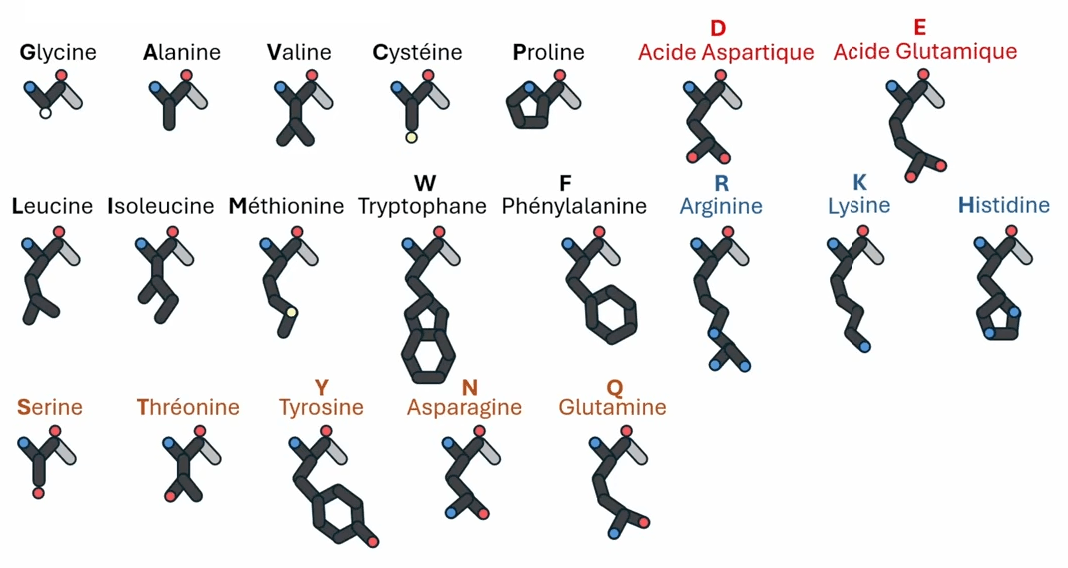
La lettre en gras est la dénomination raccourcie de l'acide aminé.
On pourrait ainsi créer une protéine, qu'on appellerait VACHE, car constituée de Valine, Alanine, Cystéine, Histidine et Acide glutamique.
noire : hydrophobes ⇒ ont tendance à s'orienter les uns vers les autres afin d'éviter le contact avec l'eau ;
bruns : hydrophiles ⇔ qui vont former des liens H, c-à-d des connexions soit avec l'eau soit avec des molécules avoisinantes. N.B. leur chaîne latérale se termine généralement en azote ou oxygène ;
- rouge : chargé négativement (acides) ⇔ la chaîne latérale se termine en oxygènes ;
- bleu : chargé positivement (basique) ⇔ la chaîne latérale se termine en azotes.
Ainsi notre protéine VACHE est composée de trois acides aminés hydrophobes, suivis de charges positive et négative.
Une séquence typique contient entre 300 et 500 acides aminés.
modélisation
La modélisation des protéines que nous venons de voir, en suites à une dimension, est appelée structure primaire.
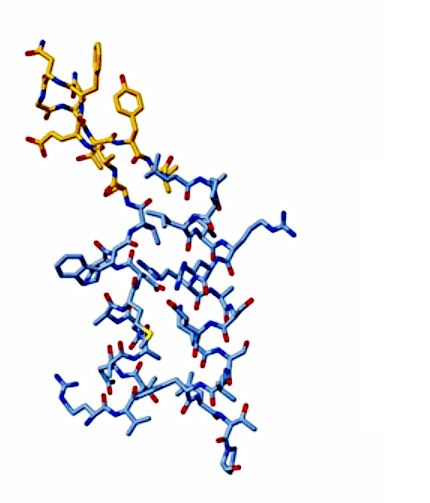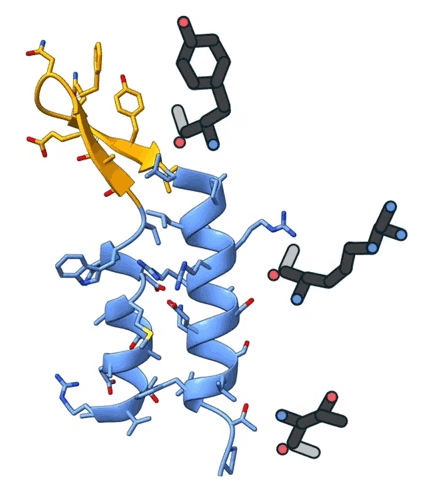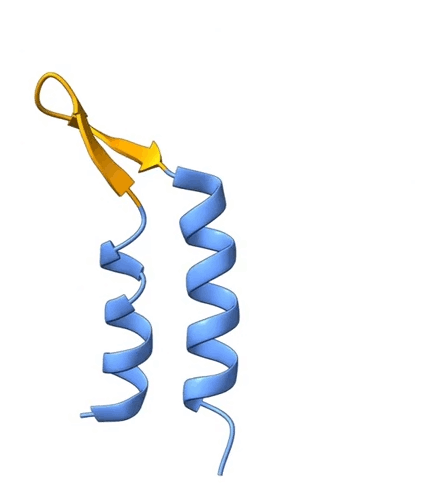
Une modélisation en trois dimensions, dite structure secondaire, permet d'atteindre un niveau de complexité supérieur dans la modélisation:
- hélices alpha : les interactions opèrent entre différents étage de l'hélice ;
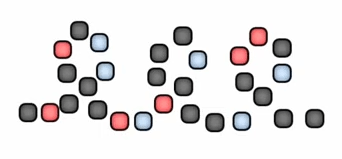
- feuillets bêta : les interactions se font entre feuillets ;
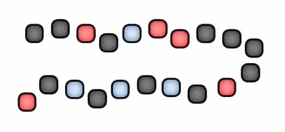
- zones désordonnées : sans structure spatiale spécifique.
On pourra ainsi modéliser des structure complexes telles qu'illustrées ci-dessous, avec deux hélices alpha (en bleu), un feuillet (en jaune) représenté par une double flèche, et des chaînes latérales (qui pourront être omises pour simplifier la représentation).
Dans le schéma suivant, les structures tertiaire et quaternaire sont combinées :
- structure tertiaire : permet de modéliser les interactions entre structures secondaires (par liens hydrogènes, disulfures ou hydrophobes/hydrophiles) ;
- structure quaternaire : association de plusieurs protéines (différentes ou identiques).
La représentation suivante illustre une protéine possédant une structure quaternaire : quatre chaînes de la même protéine mais dans des positions différentes.
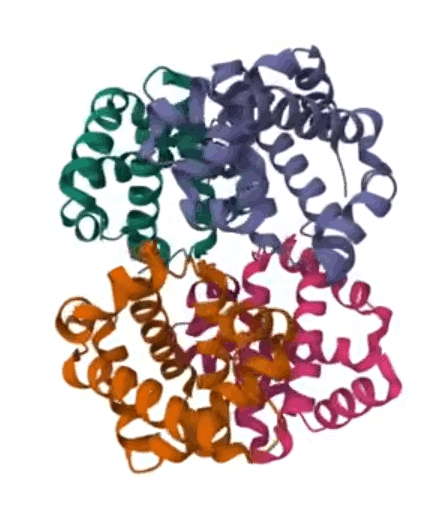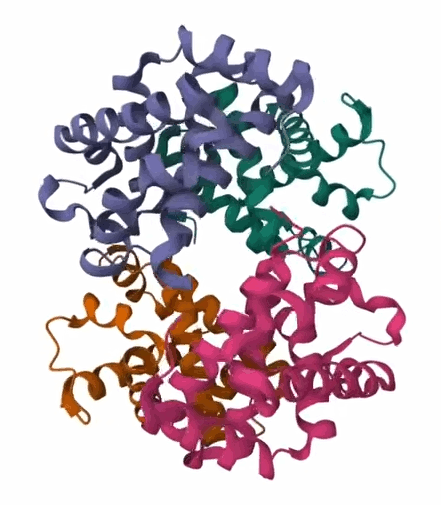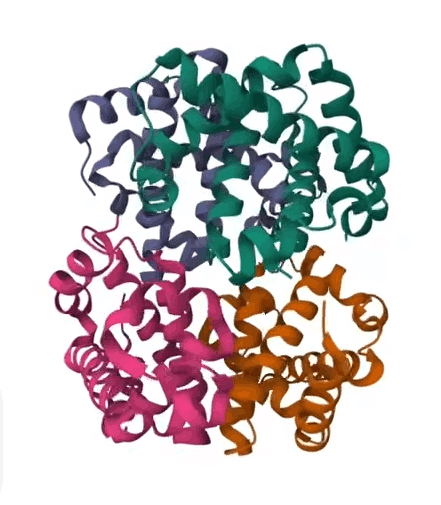
Représentation de l'hémoglobine, qui transporte l'oxygène dans le sang [source].
C'est la complexité spatiale des protéines qui leurs confère de nombreuses fonctions physico-chimiques. Ainsi les protéines sont véritablement les ouvrières des cellules.
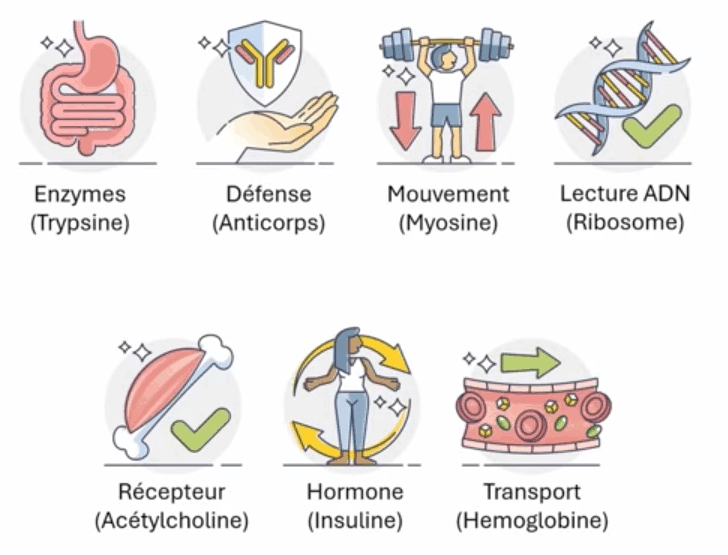
Collagène, kératine, hémoglobine, insuline, ..., l’importance de ces molécules appelées "protéines" (du grec ancien "prôtos", qui signifie "premier", "essentiel") s'exprime en terme :
- d'abondance : le corps humain est composé d'environ 60% d'eau, 15% de protéines, 6% de lipides et une vingtaine de pourcents d'autres molécules ;
- d'universalité : on les retrouve chez tous les êtres vivants ;
- de diversité : compositions & structure ⇒ fonctions.
Les protéines sont essentiellement composées de carbone, hydrogène, oxygène, azote et (en plus petites proportions) phosphore et soufre (soit les CHONPS).
Nous allons ici étudier la relation entre structures et fonctionnalités des protéines.
structurelle
Comme l'illustre l'image suivante, une protéine peut être spatialement comparée à un collier, dont les perles sont des acides aminés.

Les traits hachurés entre les acides aminés sont des liaisons peptidiques.
Il n’existe qu’une vingtaine d’acides aminés élémentaires différents, mais on peut les combiner en collier de multiples façons, ce qui donne un grand nombre de "complexes protéiques", ayant chacun une fonction spécifique (voire plusieurs). Les protéines peuvent même se combiner avec d’autres types de molécules (glucides, lipides, métaux …), et ainsi former des hétéro-protéines.
Les protéines composées à 100% d'acides aminés sont appelées "holoprotéines". Les autres, appelée "hétéroprotéines", peuvent contenir notamment un glucides (glycoprotéines) ou encore un métal (métalloprotéines, exemple : cas du fer de l'hème de l'hémoglobine, qui permet à l'oxygène de se fixer sur les parois des poumons et d'ainsi être assimilé par l'organisme).
fonctionnelle
La diversité fonctionnelle des protéines s'exprime par de multiples fonctions : structuration, mouvement, catabolisme, transport, signalisation, immunisation, stockage, fonctions spécifiques, ... :
- structuration (forme, résistance) :
- fibres de collagène liées par l'élastine dans le derme (la raréfaction de l'élastine avec l'âge provoque l'apparition de rides) ;
- kératine des cheveux, poils, ongles, cornes ; ...
- mouvement :
- contraction musculaire par la mécanique de l'actine et de la myosine ;

- mouvement cellulaire par la dynéine des flagelles des bactéries et spermatozoïdes.
- contraction musculaire par la mécanique de l'actine et de la myosine ;
- catabolisme (protéines catalytiques, à terminaisons en -ase) :
- lactase séparant glucose et saccharose composant la lactose (disaccharide), ce qui rend celle-ci absorbable par l'intestin (ainsi une insuffisance en lactase induit une intolérance au lactose) ; ...
- transport de molécule au travers des parois cellulaires :
- hèmes de l'hémoglobine, qui sert au transport des gaz respiratoires entre les organes et les poumons ; ...
- signalisation :
- insuline du pancréas : après ingestion de glucides ⇒ augmentation du taux de glucose dans le sang (glycémie) ⇒ le pancréas relâche de l'insuline dans le sang ⇒ cette hormone permet au glucose (i) d'être stocké dans le foie sous forme de glycogène, (ii) d'être utilisé par les muscles, (iii) en cas d'excès d'être stocké sous forme de tissus graisseux (ainsi le diabète de type 1 est un insuffisance de sécrétion d'insuline par le pancréas, de sorte que le sucre n'est pas utilisé ⇒ l'hyperglycémie est permanente) ; ...

- insuline du pancréas : après ingestion de glucides ⇒ augmentation du taux de glucose dans le sang (glycémie) ⇒ le pancréas relâche de l'insuline dans le sang ⇒ cette hormone permet au glucose (i) d'être stocké dans le foie sous forme de glycogène, (ii) d'être utilisé par les muscles, (iii) en cas d'excès d'être stocké sous forme de tissus graisseux (ainsi le diabète de type 1 est un insuffisance de sécrétion d'insuline par le pancréas, de sorte que le sucre n'est pas utilisé ⇒ l'hyperglycémie est permanente) ; ...
- immunisation (immunoglobulines, encore appelées "anticorps") pour l'élimination d'agresseurs externes (antigènes) : bactéries, virus, protéines (dans les cas des allergies) : les anticorps entourent les agresseurs, ce qui en fait des cibles pour les cellules tueuses (telles que les macrophages) ;
- stokage d'ions ou de petites molécules : exemple de la ferritine du foie qui stocke du fer ;
- fonctions spécifiques :
- protéines d'anti-gel permettant aux poissons de supporter des eaux très froides ;
- protéines de fluorescence (méduses, vers luisants,...) ;
- protéines de colle (permettant par exemple aux moules de s'accrocher aux rochers) ; ...
atomique
Nous avons vu qu'une protéine peut être spatialement comparée à un collier, dont les perles sont des acides aminés, alors appelés "unités protéiques". Un acide aminé est composé (cf. image ci-contre) d'un atome de carbone entouré par une fonction amine H3N+, une fonction carboxyle COO-, un hydrogène et un radical.

Sur plus de trois cent sortes d'acides aminés, seuls une vingtaine entrent dans la formation des protéines. Ces unités protéiques se distinguent essentiellement par leur radical (constituant la "chaîne latérale"), qui détermine leurs propriétés physico-chimiques spécifiques (dont leur solubilité et charge).
La plupart des acides aminés sont synthétisés par les cellules de l'organisme (synthèse "endogène"). Cependant neuf ne le sont pas, et doivent donc être apportées par l'alimentation. Ces acides aminés "essentiels" sont : histidine, leucine, thréonine, lysine, tryptophane, phénylalanine, valine, méthionine, isoleucine (mnémotechnique : « Hystérique, le très lyrique Tristan fait vachement méditer Iseult »).
Le schéma suivant illustre la liaison covalente (cf. supra /matiere#liaisons-covalentes) entre deux acides aminés : elle se fait entre la fonction carboxyle du premier et la fonction amine du second (liaison "peptidique"), au moyen d'une réaction de condensation (ou déshydratation) c-à-d de formation et éjection d'un molécule d'eau.

Le lien C-N est permis par l'expulsion d'une molécule d'eau.
L'image ci-dessous détaille la liaison peptidique de quatre acides aminés. Dans la protéine ainsi formée on distingue :
- le squelette protéique ;
- les quatre chaînes latérales de radicaux ;
- aux extrémités :
- à gauche : la fonction amine terminale ;
- à droite : la fonction carboxyle terminale ;

spatiale
La chaîne polypeptidique constituant une protéine se lit toujours de la gauche vers la droite. Cette vision linéaire est cependant très théorique. En effet, par des interactions entre ses acides aminés, cette chaîne peut se replier spatialement, lui conférant ainsi des propriétés physico-chimiques particulières.
Pour analyser la structuration spatiale des protéines on distingue quatre niveaux dimensionnels :
- la structure primaire concerne l'ordre linéaire ("1D") des acides aminés, qui détermine une séquence protéique spécifique à la protéine ;
La synthèse des protéines est réalisée par les ribosomes des cellules, en "traduisant" en protéines l'information contenue à leur sujet dans l'ADN.
-
la structure secondaire concerne le type de repliement spatial ("2D") :
soit enroulement de la protéine sur elle-même ("hélice alpha"), formant ainsi des filaments ;

Ces repliements sont le fait de liaisons hydrogènes (traits hachurés en noir dans l'image ci-dessus).
- soit formation de plaques ("feuillet bêta").
- la structure tertiaire concerne l'organisation spatiale "3D", qui détermine la nature fonctionnelle spécifique à chaque protéine ;
Les protéines mesurent entre un et cent nanomètres, et ne sont pas visibles avec les microscopes optiques ; cependant, grâce à de nouvelles techniques, il est possible de déduire leur structure spatiale.
- la structure quaternaire ("3D+") concerne la tendance des protéines à s'associer avec d'autres.
Cas de l'hémoglobine, composée des quatre globines.
Mais dans le monde vivant rien n'est figé. Ainsi la dénaturation est le phénomène de désorganisation spatiale, et donc de perte de fonctionnalités, de la protéine, sous l'action d'agents dénaturants de deux types :
- physiques (UV, ultrasons, température) : ainsi la cuisson a pour effet d'attendrir la viande par déstructuration des molécules de collagène des muscles ;
- chimiques (modification du ph, contacts avec un détergent anionique ou cationique) : ainsi l'acidité gastrique favorise la décomposition des aliments.
Glucides
Les glucides sont une famille de molécules composées de carbone, d'hydrogène et d'oxygène. On les appelle historiquement « hydrates de carbone » en raison de leur formule générale de type Cn(H2O)m.
Ces molécules peuvent être représentées de deux manières : linéaire (projection de Fischer, à gauche dans le schéma suivant) ou cyclique (représentation de Haworth, à droite). Bien que la forme cyclique soit la plus proche de la réalité en solution aqueuse, la représentation linéaire permet de visualiser plus facilement les fonctions chimiques libres.
C6H12O6
Le glucose est un aldose car sa chaîne carbonée porte une fonction aldéhyde (sur le premier carbone). Sous sa forme linéaire, il comporte également 5 fonctions alcool (groupements -OH).
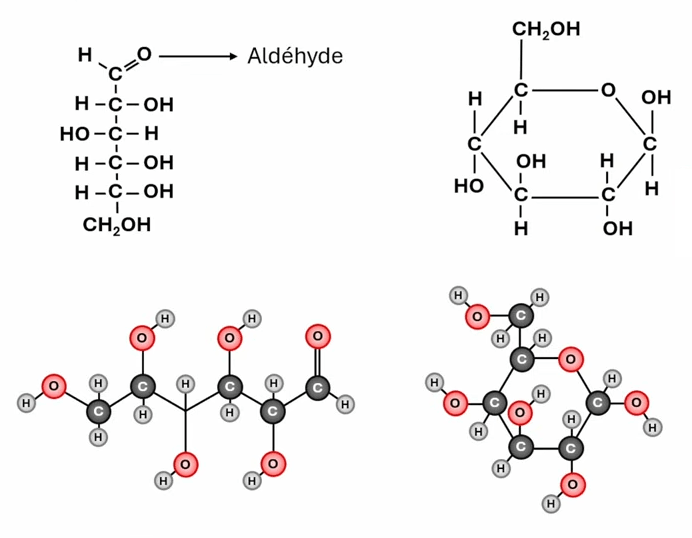
C6H12O6
Le fructose et le glucose sont des isomères de constitution : ils possèdent la même formule brute, mais leurs atomes sont agencés différemment, ce qui leur donne des fonctions chimiques distinctes. Ainsi, le fructose est un cétose car il contient une fonction cétone (sur son deuxième carbone), contrairement au glucose qui est un aldose.
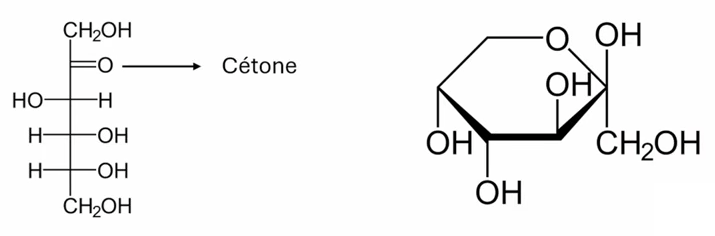
N.B. Dans ce type de représentation encore plus simplifiée (formule topologique), les intersections et les extrémités des lignes représentent des atomes de carbone, dont la présence est sous-entendue par convention.
glucidiques
Le glucose et le fructose sont des monomères (des sucres simples). Les cellules les assemblent et les stockent fréquemment sous forme de macromolécules appelées polymères :
-
L'amidon : ce polymère végétal regroupe entre 300 et 600 monomères de glucose (comme dans les pommes de terre). Lors de la digestion, l'organisme doit rompre ces liaisons grâce à des enzymes pour pouvoir assimiler le glucose.
-
Le glycogène : c'est la forme de stockage du glucose chez les animaux (principalement dans le foie et les muscles). Sa structure hautement ramifiée permet aux cellules de compacter et de libérer très rapidement une grande quantité d'énergie en cas de besoin.
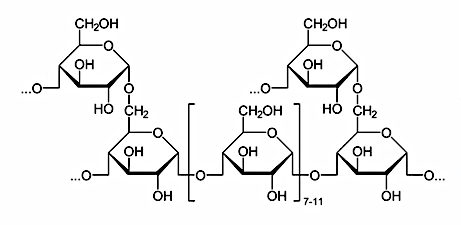
-
La cellulose : ce polymère linéaire rigide constitue l'élément majeur de la paroi des cellules végétales, assurant leur solidité structurale.
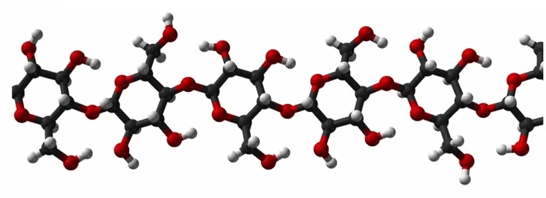
En diététique, on distingue ainsi les sucres rapides, qui sont sous forme monomérique ou dimérique directement assimilables par l'intestin, des sucres lents (polysaccharides complexes) qui demandent du temps pour être découpés en morceaux de glucose avant de passer dans le sang.
Lipides
On classe les lipides en trois familles :
Les triglycérides : lipides de réserve énergétique et d'isolation thermique (constitués de glycérol et de trois acides gras).
Les phospholipides : lipides structuraux qui forment la bicouche des membranes cellulaires (constitués de glycérol, de deux acides gras et d'un groupement phosphate).
Les stéroïdes : lipides à structure cyclique (comme le cholestérol et les hormones stéroïdiennes) qui régulent la fluidité des membranes et la signalisation de l'organisme.
Les acides gras, sont les molécules "briques de base" qui composent les triglycérides et les phospholipides.
Les acides gras se composent d'une longue chaîne carbonée CH3[CH2]nCOOH dite alkyle :
taille variable selon le nombre de groupements -CH2 ;
extrémités : un groupement -CH3 d'un côté, et une fonction acide carboxylique (-COOH) de l'autre.
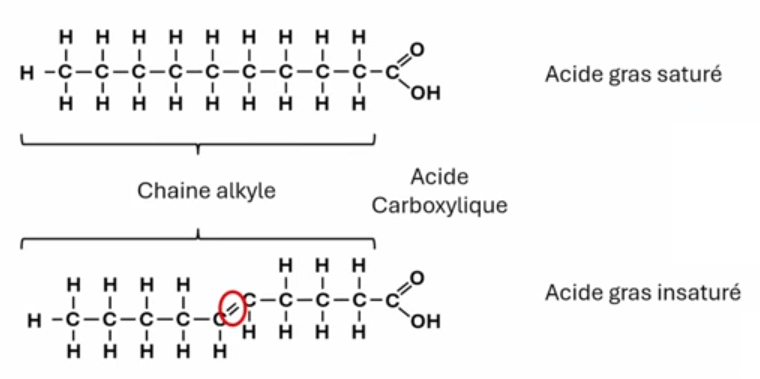
On distingue deux types d'acide gras :
Acides gras saturés : Tous les carbones de la chaîne alkyle sont liés entre eux par des liaisons simples. La molécule adopte une structure rectiligne qui lui permet de se compacter facilement.
Acides gras insaturés : La chaîne comporte une ou plusieurs liaisons doubles entre les carbones. Si la molécule a une seule double liaison, elle est dite mono-insaturée ; au-delà, elle est qualifiée de polyinsaturée.
Les triglycérides représentent la principale forme de réserve énergétique de l'organisme, stockée au sein des tissus adipeux.
Structure moléculaire. Un triglycéride est le résultat de l'assemblage d'une fonction (molécule de) glycérol unie à trois acides gras par le biais de liaisons ester. Un même triglycéride peut combiner différents types d'acides gras, tels que (cf. illustration suivante) l'acide palmitique (saturé car la chaîne ne comprend que des liaisons simples), l'acide oléique (insaturé car la chaîne comprend une liaison double) ou l'acide alpha-linolénique (polyinsaturé car la chaîne comprend plusieurs liaisons doubles).
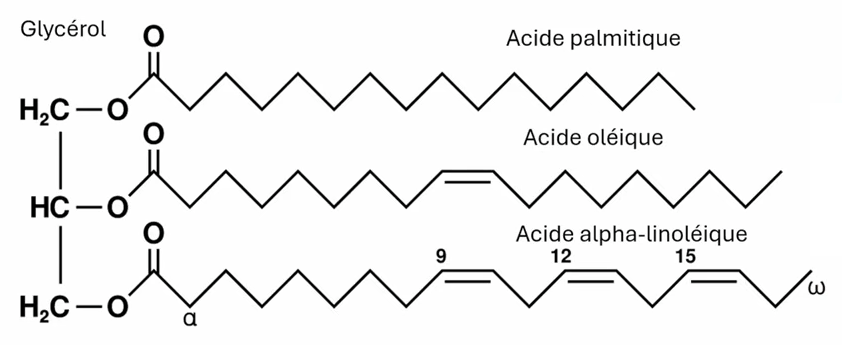
Rappel : chaque coin de la chaîne en zigzag représente un carbone.
Propriétés physiques et fonctions :
État physique : Les graisses riches en acides gras saturés (comme le beurre) se compactent facilement et sont solides à température ambiante. À l'inverse, celles riches en acides gras insaturés (comme les huiles végétales) se compactent moins bien en raison des coudes formés par les doubles liaisons, restant liquides.
Rôles biologiques : En plus de fournir une densité énergétique bien supérieure à celle des glucides (ce qui en fait une réserve thermique et métabolique idéale), ils assurent une fonction essentielle d'isolation thermique pour protéger le corps du froid.
Les phospholipides sont des lipides structurels indispensables à la délimitation de la cellule.
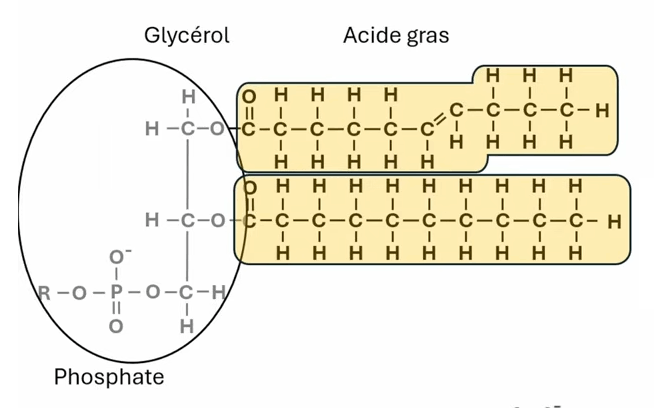
À l'instar des triglycérides, leur structure repose sur un squelette de glycérol. Cependant, seuls deux des trois groupements hydroxyles (-OH) du glycérol sont estérifiés par des acides gras (formant deux queues hydrophobes c-à-d qui fuient l'eau). Le troisième oxygène du glycérol est estérifié à un groupement phosphate, lui-même lié à un radical variable (comme la choline, l'éthanolamine ou le glycérol). Ce groupement polaire constitue une tête hydrophile, capable d'interagir avec l'eau.
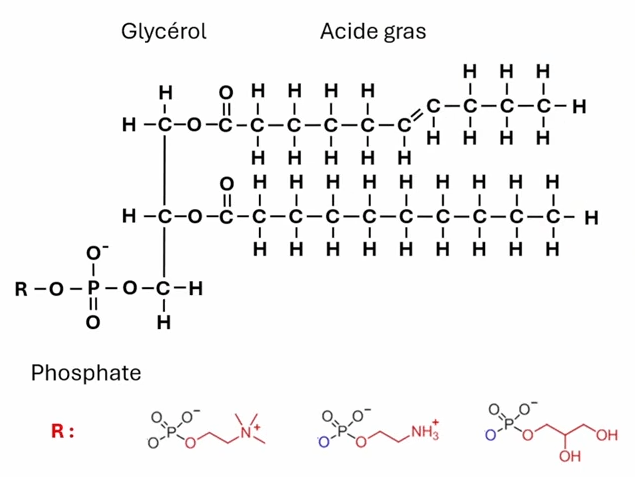
Ici on a un acide gras saturé et l'autre insaturé.
Cette double propriété – une tête hydrophile (glycérol et groupement phosphate) et deux queues hydrophobes – confère aux phospholipides un caractère amphiphile.
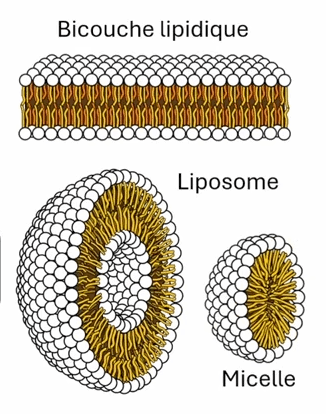
Organisation en membrane. Placés en milieu aqueux, les phospholipides s'organisent spontanément pour dissimuler leurs queues hydrophobes tout en exposant leurs têtes hydrophiles à l'eau. Cela permet la formation :
- De bicouches lipidiques (base des membranes cellulaires),
- De structures circulaires appelées liposomes,
- De micelles.
Les stéroïdes forment une famille de lipides à part, dont la structure se distingue nettement des précédentes.
La structure de base de tous les stéroïdes est le stérane, un noyau carboné hydrophobe, composé de quatre cycles accolés (trois cycles à 6 carbones et un cycle à 5 carbones).
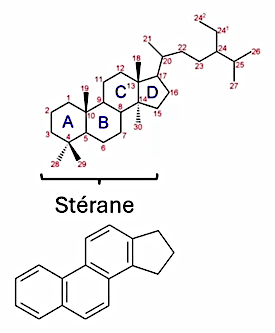
Autour de ce noyau divers éléments peuvent y être liés, formant ainsi différents stéroïdes, dont certaines hormones (cortisol, testostérone, œstrogènes).
Malgré leur forte hydrophobicité (beaucoup de carbones et peu d'éléments tels que l'azote et l'oxygène, qui pourraient rendre cette molécule hydrophile), ces molécules peuvent cependant posséder une fonction alcool (-OH) leur conférant malgré tout une légère affinité avec l'eau, à l'instar du cholestérol.
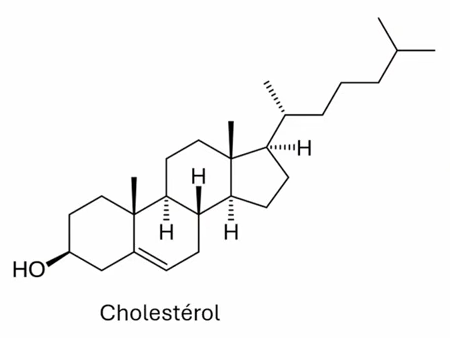
Focus sur le cholestérol. Le cholestérol possède ce noyau cyclique rigide et encombrant (cf. la zone bleue en zigzags). Il vient s'intercaler entre les phospholipides des membranes cellulaires, ce qui leur confère une certaine fluidité.
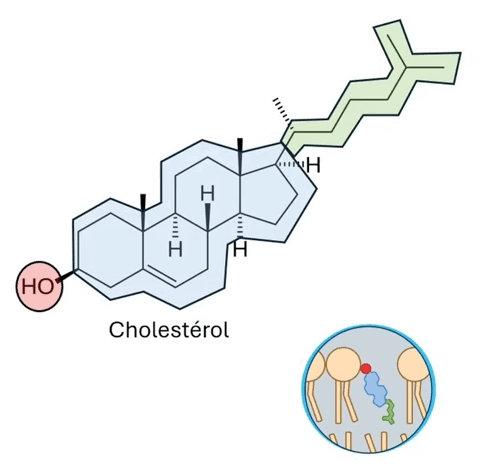
Concernant la nutrition, il n'existe pas de "bon" ou de "mauvais" cholestérol en soi. Le cholestérol est une molécule unique. Ce sont les lipoprotéines chargées de son transport dans le sang qui diffèrent : les HDL se chargent du transport protecteur ("bon"), tandis que les LDL transportent le cholestérol vers les tissus ("mauvais").
Acides nucléiques
Les acides nucléiques sont des polymères de nucléotides. Chaque nucléotide, qui constitue la brique élémentaire (monomère) de ces molécules, est composé de trois éléments distincts liés à l'échelle atomique :
un groupement phosphate : organisé autour d'un atome de phosphore central connecté à quatre atomes d'oxygène. Lorsqu'il est connecté à une chaîne supplémentaire, il n'a plus qu'une charge négative (comparez les première et seconde chaînes). C'est ce groupement phosphate qui confère à l'ADN et à l'ARN leur charge globale négative.
un sucre à 5 carbones (pentose) : les carbones sont numérotés de 1 à 5. Le carbone numéro 1 est lié à la base azotée, tandis que le carbone numéro 3 se connecte au groupement phosphate du nucléotide suivant.
une base azotée : liée directement au carbone numéro 1 du sucre (par substitution de l'hydrogène sur l'azote de la base).
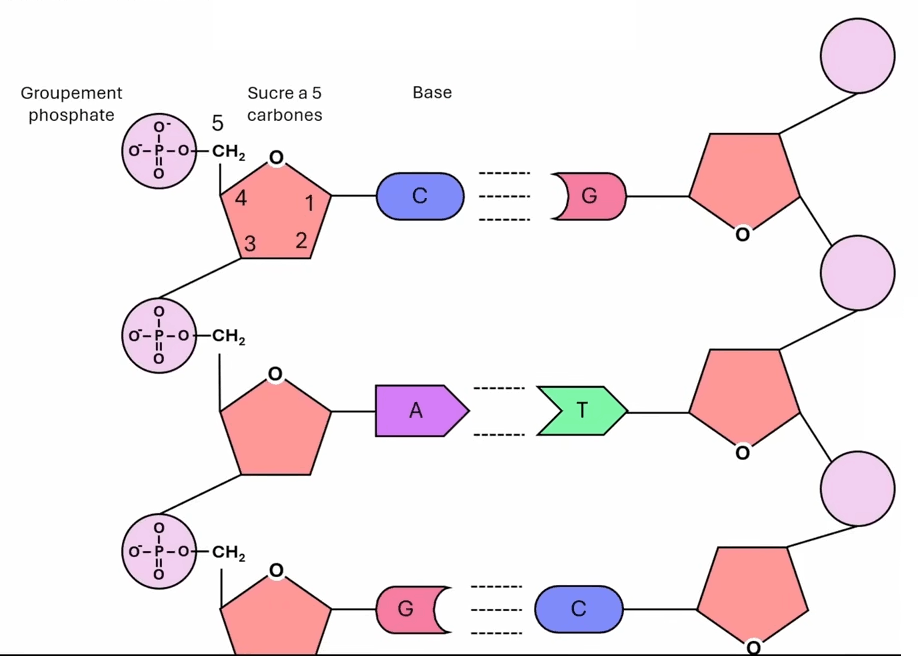
Le schéma ci-dessus correspond au cas de l'acide désoxyribonucléique (ADN), molécule en structure à double brin (ou double hélice). Ainsi deux chaînes de nucléotides s'assemblent face à face, mais dans des sens opposés/antiparallèles (cf. dans la représentation du second brin du schéma ci-dessus, l'inversion des sucres).
Les liaisons se font par l'intermédiaire de quatre bases, formant les "barreaux" de cette échelle torsadée (cf. schéma suivant) :
les purines (A et G) : molécules formées d'un double cycle (un cycle à 5 atomes accolé à un cycle à 6 atomes) :
- adénine (A) : capable de former 2 liaisons hydrogène dans le chaînon de l'ADN.
- guanine (G) : capable de former 3 liaisons hydrogène.
les pyrimidines (C et T) : molécules formées d'un cycle simple à 6 atomes :
- cytosine (C) : capable de former 3 liaisons hydrogène.
- thymine (T) : capable de former 2 liaisons hydrogène.
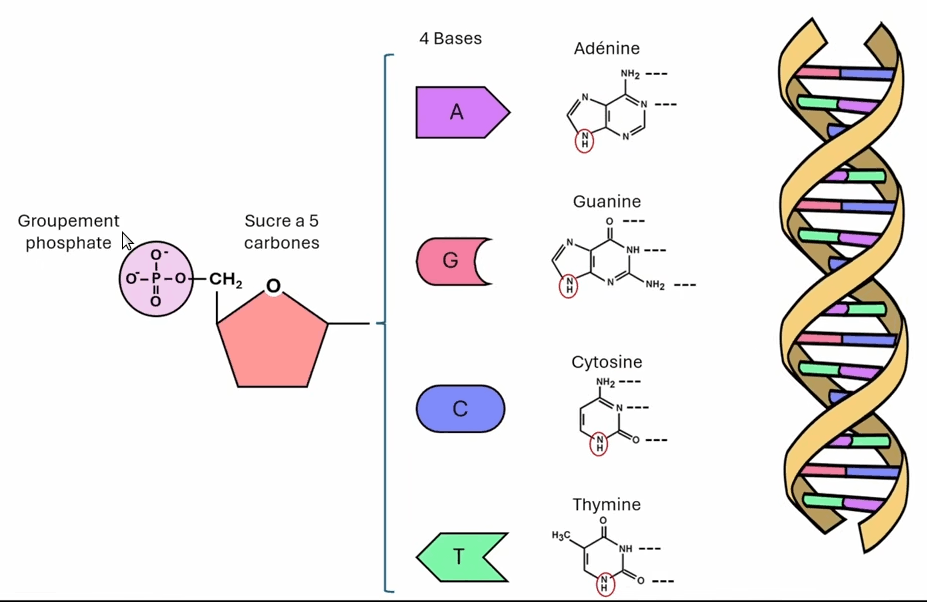
N.B. Entourée de rouge, la fonction NH, qui perd son atome H, de sorte que l'atome d'azote de la base se lie avec le carbone du sucre.
Par conséquent, la cytosine va pouvoir s'associer avec la guanine (liaison forte à 3 H), et la thymine avec l'adénine (liaison à 2 H). On obtient ainsi deux types de barreaux : CG/GC et TA/AT
L'acide ribonucléique (ARN) partage de nombreuses similitudes avec l'ADN, mais s'en distingue par trois différences majeures :
la nature du sucre : comme illustré dans la partie inférieure gauche du schéma suivant, sur le carbone numéro 2 du pentose, l'ADN possède un désoxyribose (absence de fonction alcool, d'où le terme "désoxy"), tandis que l'ARN possède un ribose muni d'une fonction alcool (-OH). Cette simple fonction chimique rend l'ARN beaucoup moins stable chimiquement que l'ADN.
le barreau TA devient UA, la Thymine étant remplacée par l'Uracile (U), une base pyrimidine capable de former également 2 liaisons hydrogène.
la configuration spatiale : contrairement à l'ADN qui est un double brin, l'ARN se présente généralement sous la forme d'un brin unique (simple brin).
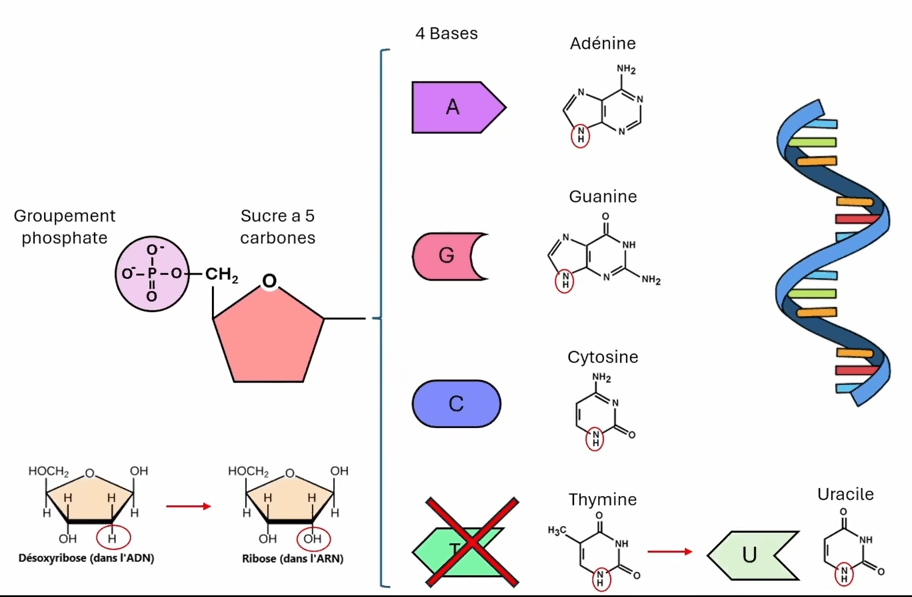
Rôle biologique : L'ADN sert au stockage sécurisé et stable de l'information génétique à long terme. Cette information est ensuite transcrite en ARN (molécule à courte durée de vie), qui est à son tour utilisé par la cellule pour synthétiser les protéines.
Cellule
La cellule est elle-même un organisme vivant, avec ceci de particulier qu'elle constitue l'organisme vivant élémentaire c-à-d tel que :
- ses constituants ne sont pas des organismes vivants (notion de "machinerie cellulaire") ;
- elle constitue la "brique élémentaire" dont sont faits tous les organismes vivants (NB : il existe des organismes composés d'une seule cellule, tel que l'euglène qui est une algue);
Les cellules exercent des fonctions biologiques. Par exemple les globules rouges – qui sont un des trois types de cellules constitutives du sang (avec les globules blancs et les plaquettes) – ont pour effet de transporter les gaz respiratoires des poumons vers les organes.
Il existe différentes façons de classer les cellules en types de cellules, une d'elle consistant à distinguer cellules animales et cellules végétales. Mais la typologie la plus fondamentale est probablement celle distinguant les cellules selon qu'elles comportent ou pas un noyau :
- procaryotes : cellules sans noyau (typiquement les bactéries) ; taille : 1-10 µm (1 μm = 10−6 m, c-à-d un millième de mm) ;
- eucaryotes : cellules avec noyau (qui dans l'évolution de la vie sont apparues longtemps après les procaryotes) ; taille : 10-100 µm.
Étymologie : du grec "caryote" : noyau, "pro" : avant (NB : les procaryotes sont apparus avant les eucaryotes), "eu" : bon.

Coupe d'une cellule eucaryote schématique, à côté de deux cellules procaryotes.
Dans les deux types de cellules la membrane plasmique délimite la cellule et sépare le milieu extracellulaire du cytoplasme. Ce dernier désigne le milieu intracellulaire dans lequel les composantes de la cellule, appelées organelles, sont en suspension (eucaryotes : noyau, mitochondries, appareil de Golgi...).
La bactérie, probablement l'organisme unicellulaire le plus simple, vérifie les trois critères définissant un organisme vivant :
- réponse à des stimuli : elle peut détecter de la nourriture et se diriger vers elle, à l'aide de cils situés sur sa membrane ;
- échanges avec l'environnement : au travers de sa membrane elle ingère matière & énergie, puis évacue des déchets ;
- se reproduisent de façon autonome : elle se reproduit, par division cellulaire (pincement de la membrane).

Cellule bactérienne (donc sans noyau) avec sa zone nucléotide (sans membrane : il n'y a pas de noyau) généralement constituée d'un double brin d'ADN circulaire.
Certaines cellules circulent dans l'organisme (exemples : globules rouges du sang, bactéries, ...), tandis que d'autres sont jointes entre elles pour former un tissus cellulaire, comme illustré dans cette photo (au microscope optique) d'une pelure d'oignon. On y distingue clairement la membrane et le noyau de chaque cellule du tissus.

Tissus cellulaire constituant une pelure d'oignon
L'organisme humain est ainsi composé d'environ cent mille milliards (100.000.000.000.000) de cellules. Mais il existe également des organismes unicellulaires c-à-d composés d'une seule cellule. C'est le cas des bactéries, ou encore de l'euglène, une algue, dont le noyau apparaît en rouge sur la photo ci-contre (alors que les bactéries n'ont pas de noyau).

Euglène : algue unicellulaire (observée au microscope optique).
Le fait que les composants de la cellule ne sont pas eux-mêmes des organismes vivants posent une question passionnante : qu'est ce qui fait qu'un assemblage de corps non-vivants (la "machinerie cellulaire") devient vivant ? Qu'est-ce qui explique ce passage de la matière inerte à la matière animée ?
En fait nous avons déjà posé les prémisses de la réponse à cette question, dans la section #cohesion-electromagnetique, où nous avions montré le rôle fondamental joué par l'électricité dans les interactions dynamiques et chimiques entre atomes, via des forces d'attraction et répulsion. Nous avions vu ensuite le rôle complémentaire joué par la notion de différence de potentiel énergétique dans ces interactions.
Nous allons étudier ici comment ces phénomènes physiques et chimiques peuvent expliquer le passage de matière inerte à matière vivante. Pour ce faire nous allons grimper de l'échelle atomique à l'échelle moléculaire, puis à celle de cellule, et enfin aux tissus organiques. Les tissus organiques sont constitués de cellules organiques, elles mêmes composées de molécules chimiques, elles-mêmes constituées d'atomes.
N.d.A. Matière animée vs inanimé
Le passage de la matière inerte à la matière vivante est le fruit d'interactions entre atomes et molécules. Ces interactions ne sont pas soumises au seul hasard, elles exercent également une fonction consistant à maintenir un équilibre vital entre l'organisme vivant et son environnement (notion de métabolisme). Cette préservation d'un équilibre vital est un mécanisme d'adaptation, qui requiert un système de gestion des fonctions vitales.

Ce schéma est une simplification discutable des relations, bien plus complexes, entres les éléments évoqués. Son but est d'illustrer la distinction entre entre matière inanimée vs animée.
Un domaine particulier de la recherche en morphogenèse concerne un « substrat géométrique, topologique et mécanique » de l’embryon, qui serait conservé au cours de l'évolution. Dans l’embryogenèse précoce, les cellules se divisent selon des mécanismes mécaniques analogues, indépendamment des espèces concernées. Cette constance autorise la construction de modèles génériques, capables de saisir les principes fondamentaux de l’auto-organisation cellulaire. La génétique intervient alors comme un niveau secondaire, que l'on pourrait comparé à un "circuit imprimé" encodant les règles de décision des cellules, mais non leur architecture de base [source].
cellulaire
Il y a là une analogie flagrante avec le système d'exploitation d'un ordinateur, qui gère le bon fonctionnement de ses programmes (le système d'exploitation, étant un programme gérant les autres, est qualifié de "méta-programme"). Par exemple lorsque la température des processeurs dépasse un certain niveau, le ventilateur est automatiquement actionné par le système d'exploitation, jusqu'à ce que la température des processeurs soit redescendue en-dessous de la limite maximale programmée.
Le métabolisme des organismes vivants ne gèrent pas que le traitement d'informations (les bits pour l'ordinateur) et d'énergie (l'électricité pour l'ordinateur), mais plus généralement de matière. La cellule peut donc être vue comme unité de production non seulement de "services" mais aussi de "produits" de base. À titre d'illustration, on pourrait faire les analogies du tableau suivant (NB : toute analogie est partiellement abusive ou restrictive).
| Usine | Cellule | |
|---|---|---|
| Protection | enceinte | membrane cellulaire |
| Input | matière première + énergie | |
| Output | produits/services finis + déchets (*) | |
| Producteurs | ouvriers + machines | molécules |
| Gestionnaires | direction + ingénieurs | ADN |
(*) La notion de "déchet" est relative : ce qui est inutile voire toxique par un organisme peut utile pour un autre type d'organisme. Ainsi notre flore intestinale est constituée de bactéries qui digèrent certains aliments que nous digérons mal : ainsi ce sont dans leurs déchets que notre organisme va trouver certaines substances dont il a besoin.
N.d.A. Concernant les fonctions assumées par les cellules (ligne "output" du tableau ci-dessus) on peut les regrouper comme suit :
- fonctions spécifiques aux cellules spécialisées (cellules du sang, de la peau, des muscles, du système nerveux,...) ;
- fonctions propres à toutes les cellules c-à-d nécessaires à leur fonctionnement : se reproduire, se nourrir, se déplacer et se défendre.
Au niveau des organites cellulaires, qui sont propres à toutes les cellules, les cellules spécialisées se caractérisent par des niveaux de développement différents de ces organites.
biologique
Le tableau et le schéma supra suggèrent que c'est au niveau des molécules qu'opèrent les mécanismes par lesquels des corps non vivants constituent l'organisme vivant élémentaire qu'est la cellule.
Nous avons vu qu'une molécule est un assemblage d'atomes liés par des forces électrique (cf. #cohesion-electromagnetique). Contrairement à la molécule d'eau par exemple (H2O), les molécules biologiques sont plus complexes et donc plus grandes par nature, ce qui est logique : les fonctions biologiques qu'elles assument doivent bien reposer sur quelque chose de matériel. Deux exemples de molécules biologiques sont :
- le glucose (C6H12O6) : est un sucre, utilisé comme source d'énergie par la plupart des organismes vivants ;
- la cystéine (C3H7NO2S) : est un acide aminé, les acides aminés sont les molécules de base des protéines, qui se présentent spatialement sous la forme de chaînes d'acides aminés.
Agencement spatial des atomes. Une autre molécule, bien plus célèbre, est le cholestérol (C27H46O). Nous l'évoquons ici pour illustrer le fait que des molécules peuvent êtres composées d'un grand nombre d'atomes différents, de sorte que l'agencement spatial de ces molécules peut prendre un grand nombre de formes différentes Par conséquent la représentation imagées des molécules, sous formes de sphères reliées par des bâtonnets, ne fait sens que pour des molécules simples : en effet en cas de grand nombre d'atomes, le nombre de combinaisons possibles pour leur agencement spatial est considérable (approfondir : à chaque combinaison spatiale d'une même molécule ne correspond-il pas un profil fonctionnel spécifique ?).
Économie. Le grand nombre de molécules différentes (des milliards de milliards), et partant leur variété et complexité, est le résultat d'un nombre étonnamment limité d'atomes : une centaines connus à ce jour (cf supra #tableau-periodique). Et cette économie de moyens est encore plus frappante dans le cas des molécules biologiques (c-à-d constitutive de cellules) dont la quasi totalité est composée de ... six type d'atomes différents : carbone, hydrogène, oxygène, azote, phosphore et soufre (CHONPS).
L'agencement spatial des atomes d'une molécule est un élément déterminant de ses propriétés physico-chimiques ⇒ de ses fonctions biologiques. Cela est parfaitement illustré par les phospholipides dont la forme est caractéristique :
- une tête : hydrophile, centrée ici sur un atome de phosphore. ;
- une double queue : hydrophobe, sous forme de chaînes lipidiques.

Phospholipide
Ces propriétés mécanique (leur forme) et chimique (interaction attractive ou répulsive avec l'eau), ont pour effet que, lorsqu'ils baignent dans l'eau, les phospholipides réagissent automatiquement en s'organisant spatialement, selon une régle simple : les têtes s'orientent vers l'eau, tandis que les queues s'orientent dans le sens opposé. Ainsi, s'ils sont suffisamment nombreux, ils forment alors une micelle de phospholipides (cf. image ci-contre).

Coupe d'une micelle de phospholipides
Dans cette dynamique il peut arriver qu'une micelle se construise autour d'une masse d'eau. Les mêmes règles d'orientation conduisent alors automatiquement à une structure de type "sphère avec noyau" dont les surfaces externe et interne sont constituées par les têtes hydrophiles.

Coupe d'une micelle de phospholipides
La parois de cette sphère est ainsi composée d'un bicouche lipidique, que l'on peut voir également comme une ... membrane cellulaire ! Voilà qui illustre parfaitement le fait que les cellules sont composées de molécules.

Bicouche lipidique
Étudions maintenant la plus célèbre des molécules : l'ADN.
ADN
2. Découverte de l'ADN
3. Chromosomes
Introduction

L'acide désoxyribonucléique, ou ADN, est une macromolécule biologique présente dans toutes les cellules. Cette molécule fondamentale du phénomène vital est constituée de cinq des traditionnels six atomes composants des molécules : carbone, hydrogène, oxygène, azote, phosphore (le sixième étant le soufre, cf. CHONPS).
L'ADN contient le programme de la machinerie cellulaire, et donc de la vie ! Ce faisant il constitue également un "patrimoine génétique" déterminant l'aspect et les capacités propres à chaque individu, et que celui-ci transmet à ses enfants.
L'ADN a l'aspect d'une pelote de fil, et l'image ci-contre montre la structure de ce fil.
Il s'agit donc d'une sorte d'échelle torsadée (en colimaçon), que l'on appelle structure "en double hélice". Les échelons de cette échelle comportent en leur milieu une zone vide mais constituant un champ d'attraction entre les deux parties de chaque échelon (et donc entre les deux montants).

Forme simplifiée d'un brin d'ADN (morceau du fil).
En outre il n'y a que quatre types de demi-échelon : A pour adénine (ici en bleu), C pour cytosine (rouge), G pour Guanine (orange), T pour Thymine (vert). Ces demi-échelons ne s'associent que par deux types de couples : (A,T) et (C,G).

Forme simplifiée
L'illustration ci-dessous montre que chaque demi-échelon est une molécule, et que l'espace en son milieu est en réalité une liaison chimique (double flèches jaunes) avec un atome d'hydrogène (sphères blanches) [sur les liaisons chimiques cf. supra : #cohesion-electromagnetique].

Forme simplifiée
Programme. Cet alphabet chimique composé de seulement quatre lettre permet de composer le message chimique que représente l'ADN. Celui-ci est composé de 3.400 millions exemplaires des quatre lettres (A,C,G,T), soit environ 3.400 livres de mille pages. En terme fonctionnel on peut faire l'analogie suivante : l'ADN est à la machinerie cellulaire ce que le système d'exploitation (le programme gérant le fonctionnement des autres programmes) est à l'ordinateur.
Cette structure de l'ADN et sa fonction de messagerie chimique sont communes à tous les organismes vivants : des bactéries aux humains, et tous les organismes constituant les règne animal et végétal. Par contre on observe un diversité dans une seconde fonction de l'ADN, induite par la première : la reproduction.
Reproduction. La messagerie ADN sert notamment dans la reproduction de l'organisme vivant, car l'ADN est fait pour être copié et reproduit (duplication). Il existe différents modes de reproduction, le plus simple étant celui des bactéries, que nous allons présenter ici.
Les bactéries, organismes unicellulaires sans noyau, sont présentes dans tous les types de biotopes rencontrés sur Terre. Elles ont une importance considérable dans les cycles biogéochimiques comme le cycle du carbone et la fixation de l’azote de l’atmosphère. Un nombre important de bactéries vit dans le corps humain. La plupart de ces bactéries sont inoffensives ou bénéfiques pour l'organisme. Il existe cependant des espèces pathogènes à l'origine de maladies infectieuses. Enfin les bactéries sont utiles dans des processus de fabrication (agro-alimentaire, chimie, ...) et de recyclage (traitement des eaux usées,...).
L'ADN baigne dans le milieu cellulaire, qui comprend d'autres éléments cellulaire (machinerie cellulaire) dont des nucléotides, qui sont des molécules que l'on peut comme voir comme des demi-échelons (ou des composés de demis-échelons). La reproduction se fait par séparation des deux montants de l'échelle ⇒ des nucléotides libres du milieu cellulaire viennent "s'accoupler" avec un partenaire situé sur un montant : A avec T et C avec G ⇒ à la fin de ce processus on obtient deux échelles identiques.

Duplication d'un brin d'ADN, par insertion de nucléotides libres.
Le graphique ci-dessus illustre ce mécanisme de duplication d'un brin d'ADN, par insertion de nucléotides libres : la séparation des deux montants se propage sur la longueur de l'échelle (ici vers le haut) comme une tirette ouvrante. Sur cette image on voit un couple A-T prêt à se dédoubler : à gauche A va se lier avec un T venu du milieu cellulaire pour former A-T, et à droite T va se lier avec un A venu du milieu cellulaire pour former A-T.
Une fois la duplication de l'ADN réalisée, la cellule comprends alors deux pelotes d'ADN, ce qui va déclencher un mécanisme de pincement de la membrane cellulaire entre les deux pelotes, jusqu'à division en deux cellules comprenant donc le même ADN (... du moins en théorie car en pratique il y a de nombreux "accidents" de reproduction, produisant ainsi des "variants"). Ce processus dure une vingtaine de minutes (dans la section #exponentielle supra nous avons étudié la multiplication exponentielle d'Escherichia coli).

Cellule en phase de reproduction, après duplication de l'ADN et avant division cellulaire.
Des organismes plus évolués ont développé d'autres modes de reproduction, permettant d'évoluer plus rapidement. C'est le cas de la reproduction sexuée, qui comme sont nom l'indique implique l'accouplement de deux organismes de sexes différents. Chaque parent donne ici 50% de son ADN (*), de sorte que les enfants ressemblent à leurs parents, mais sans en constituer des copies. D'autre part la composition des deux portions parentales varie à chaque reproduction, de sorte que les frères et soeurs ne se ressemblent pas non plus totalement (sauf chez les vrais jumeaux, appelés "monozygotes", qui ont le même ADN).
(*) Chaque chromosome est copié depuis le génome du père ou de la mère dans le gamète puis dans les cellules de l'enfant ⇒ chaque chromosome est donc d'origine paternelle ou maternelle, mais en moyenne l'origine est également répartie entre père et mère (N.d.A : en raison d'un processus aléatoire ?). Cependant le gène du père est généralement identique à celui de la mère : les deux copies du gène, de l'insuline par exemple, sont généralement identiques [source].
Conclusion. L'ADN est le "programme" de la "machinerie cellulaire", et joue un rôle fondamental dans la reproduction. À l'instar de l'empreinte digitale, le message que représente l'ADN est propre à chaque individus (sauf pour les jumeaux monozygotes), mais le fonctionnement de la messagerie est commun à tous les organismes vivants. N.d.A. : les différences d'aspect et de performance entre individus d'une même espèce ne sont pas seulement génétiques, mais également acquises durant la vie.
Soulignons également qu'il n'y a pas de corrélation entre d'une part la taille ou la complexité apparente d'un organisme, et d'autre part la taille de son génome : ainsi l'homme a beaucoup moins de gènes qu'un grain de riz ! Enfin certaines bactéries ont jusqu'à 40 % de gènes qui ne servent à rien.
Découverte de l'ADN
Au 19e siècle on avait déjà observé depuis longtemps que les enfants ressemblent à leurs parents, mais on ne savait pas encore expliquer pourquoi. On spéculait qu'il devait y avoir une forme ou l'autre de transmission des caractères des parents vers leurs enfants (pelage, taille, etc.), phénomène appelé "hérédité".
La science qui étudie l'hérédité s'appelle "génétique" (du grec "genesis" qui signifie "origine" ou "naissance").
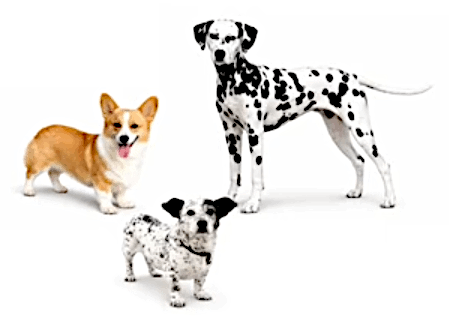
La morphologie de l'enfant est ici un mélange de celles de ses parents.
Cependant on savait déjà que la fécondation se réalisait par la fusion entre deux cellules – dans le cas des animaux, entre un ovule de la femelle et un spermatozoïde du mâle – résultant en un embryon qui se transformera progressivement en bébé.
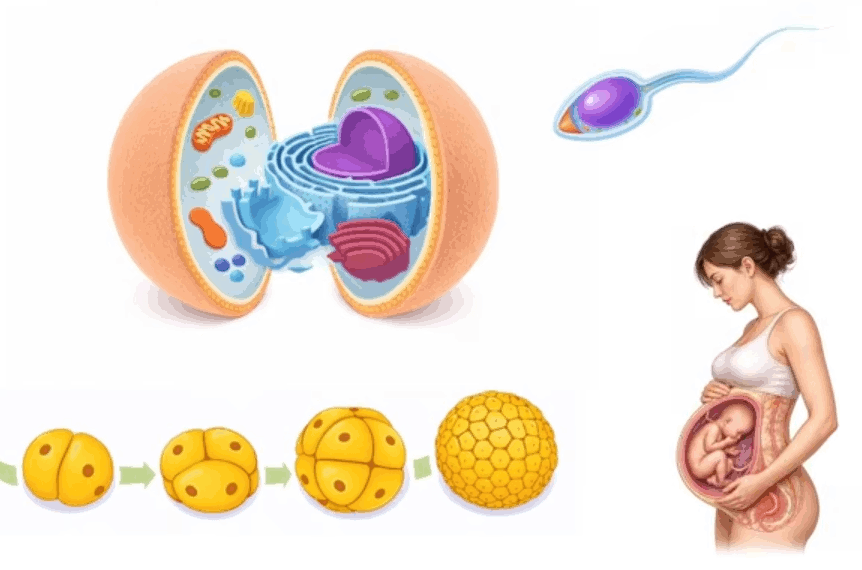
On se doutait alors qu'il devait y avoir de l'information maternelle provenant de l'ovule et de l'information paternelle provenant du spermatozoïde.
Il en va de même pour les plantes à fleurs, dont chaque individu dispose de cellules reproductrices mâles et femelles :
- femelles : les oosphères se situent au fond du pistil ;
- mâles : les grains de pollen se situent dans les étamines.
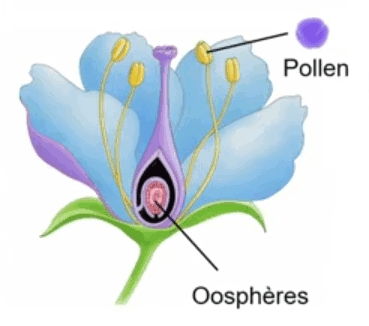
Une fleur est donc en mesure de s'autoféconder, mais peut aussi être fécondée par du pollen provenant d'autres individus, et transporté par le vent ou des insectes (fécondation croisée).
Les mécanismes de l'hérédité furent découverts grâce aux travaux de Gregor Mendel sur le croisement de pois de couleurs différentes (verts et jaunes). Alors qu'il s'attendait à observer qu'un croisement donnerait une génération d'individus vert-jaune ou d'individus verts avec des individus jaunes, le résultat fut très différent ...
génétique
Mendel observa en réalité que les individus de la première génération (F1) sont tous verts. Par contre, en croisant des individus de cette génération F1, il obtint en génération F2 des individus verts et des individus jaunes, mais dans une proportion asymétrique : 75% de verts et 25% de jaunes. Mendell en déduisit que l'information génétique qui code pour le jaune n'a pas été perdue, mais qu'elle ne s'exprime pas en F1.
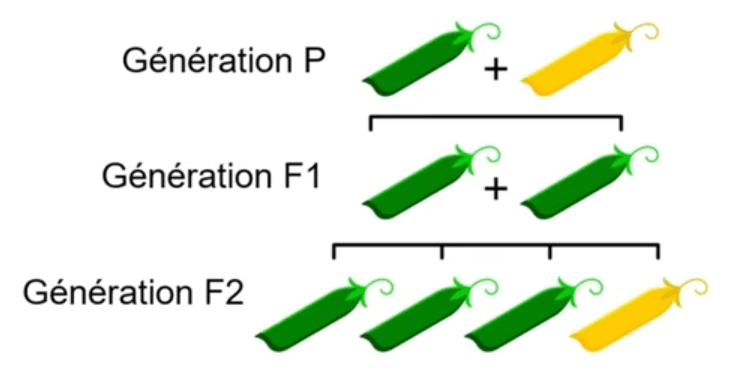
N.d.A. Ces informations génétiques sont notamment :
• "La couleur est verte".
• "La couleur verte est dominante en proportion 3/4".
Restait à trouver le support matériel de ces informations génétiques, qui devait nécessairement se trouver dans une molécule d'une cellule (une molécule contenant l'information pour le vert, et une autre pour le jaune). Les cellules contiennent donc des informations (appelées facteurs héréditaires ou gènes) qui déterminent les caractères des individus.
Mendell déduisit des ses travaux que chaque gène (ici celui codant pour la couleur) existe en deux versions différentes appelées allèles. En l'occurrence, pour le gène qui code la couleur, le parent vert a deux allèles verts, et le parent jaune deux allèles jaunes. Le raisonnement permettant d'expliquer ses observations est qu'au moment de la fécondation, les deux allèles d'un parent se séparent, et peuvent ainsi se joindre à l'un ou l'autre de ceux de l'autre parent. Le tableau suivant expose les combinaisons possibles.
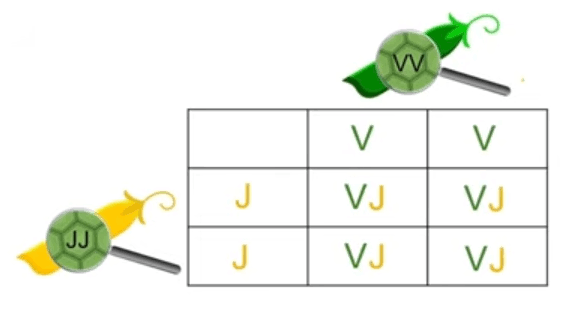
Pour expliquer les proportions observées en F1 (100% de V) et F2 (75% de V), Mendell suppose alors qu'un allèle est dominant ou récessif, le caractère dominant l'emportant sur le récessif. Un caractère récessif ne s'exprime que par une combinaison pure de deux allèles récessifs, tandis qu'une combinaison mixte (ici VJ) n'exprimera que l'allèle dominant (ici V).
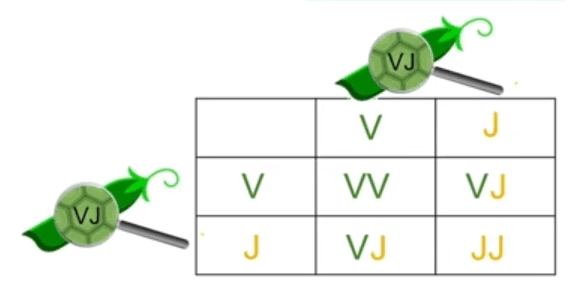
Questionnement (N.d.A.). Comment Mendell pouvait-il savoir que le parent vert de génération P de son expérimentation avait deux allèles verts, puisqu'il aurait pu tout aussi bien être VJ. Réponse par IA : Mendel s'assurait que ses parents étaient « purs » (homozygotes VV ou JJ) en pratiquant l'autofécondation sur plusieurs générations.
C'est ce raisonnement que l'on appelle information (au sens de "règle") génétique. Restait cependant à comprendre la nature du support physique de ce code.
du code
On savait déjà que les protéines jouaient de nombreux rôles importants dans la cellule, c'est pourquoi, elles constituaient l'élément le plus probable de support physique du code génétique. Cependant, nous allons voir comment l'on découvrit, progressivement, que le support de l'information génétique ce ne sont pas des protéines mais un acide.
Au XIXe siècle, Friedrich Miescher, spécialiste de la recherche sur le noyau des cellules (dont on ne connaissait pas encore la composition), récupéra des pansements usagés contenant du pus, et donc des globules blancs, qui sont un type des cellules constituant le sang. Il plongea les pansements dans une solution qu'il filtra ensuite pour enlever les débris, ce qui lui permit d'isoler les globules blancs. Ensuite il ajouta du sel afin de déstabiliser les membranes des globules blancs, afin qu'elles se déchirent, et libèrent ainsi leur contenu, dont le noyau. Puis, par une filtration supplémentaire, il isola les noyaux. Enfin, en ajoutant du carbonate de sodium, il déstabilisa les noyaux et en dénatura ainsi le contenu, dont des protéines qu'il contenait.
Les protéines sont constituées d'acides aminés, eux-mêmes composés de carbone (C), d'hydrogène (H), d'azote (N)) et d'oxygène (O), et parfois de soufre.
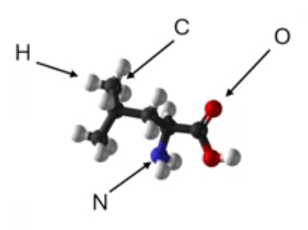
En procédant à des analyses élémentaires, Miescher put confirmer la présence de certains éléments contenus dans les acides aminés. Ainsi il confirma la présence d'acides aminés et donc de protéines dans les noyaux de cellules.
Une analyse élémentaire consiste à faire une réaction permettant de confirmer la présence d'un élément. Par exemple en ajoutant du plomb à une solution contenant du soufre, on provoque entre les deux une réaction produisant un composé de couleur noire, ce qui indique que le plomb a été ajouté à du soufre.
En ajoutant de l'acide acétique, il a provoqué une réaction formant un composé blanc, puis en ajoutant du molybdate une nouvelle réaction produisit un composé jaune, révélant ainsi la présence de phosphore sous forme de phosphate.
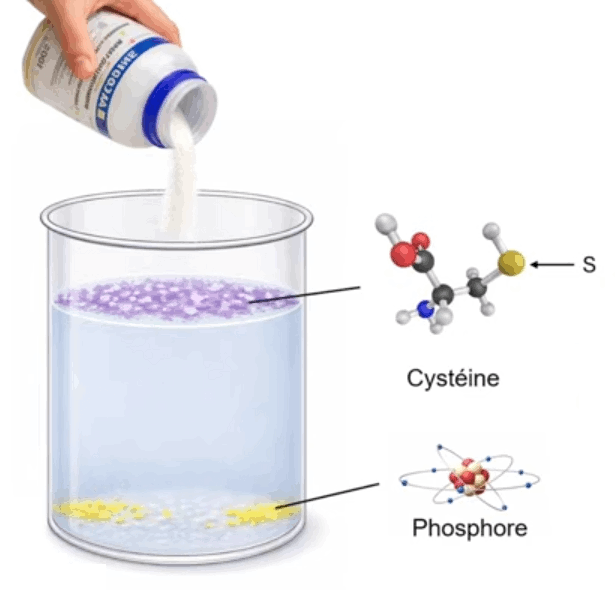
Cette découverte de phosphore dans le noyau fut une surprise, car les protéines ne contiennent pas de phosphore. On avait donc découvert une nouvelle substance, que Miescher appela nucléine (puisque contenue dans le noyau).
Ensuite Albrecht Kossel poursuivit l'étude de la nucléine à partir de cellules de glandes.
L'analyse élémentaire révéla que la nucléine est composée de quatre bases azotées : adénine, thymine, guanine et cytosine.
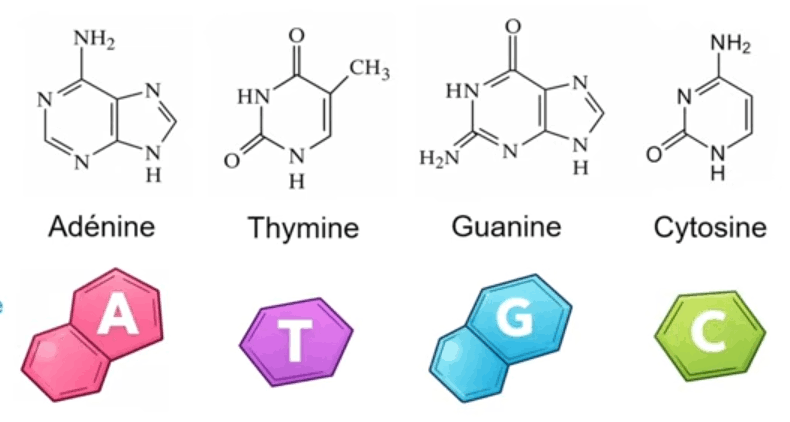
Ces structures exactes des bases azotées ne seront découvertes que plus tard, par d'autres scientifiques, au moyen d'analyses de chimie organique structurale.
On constate ci-dessus que ces molécules sont riches en azote (d'où leur nom) mais qu'elles ne contiennent pas de phosphore. Mais où se trouve alors celui-ci, que Miescher avait pourtant identifié ? Autrement dit, la nucléine est donc composée d'autres éléments que les seules bases azotées.
Erwin Chargaff réalisa des études quantitatives pour évaluer les proportions des bases azotées dans des cellules de différentes espèces et même règnes du monde vivant : animaux, végétaux et bactéries.
Pour ce faire, il utilisa la chromatographie sur papier pour séparer les bases, et un spectrophotomètre UV pour les quantifier.
Chargaff fit ainsi une découverte remarquable : quel que soit le type de cellule et de règne du vivant, on a toujours les égalités quantitatives suivantes :
- Q(Adénine) = Q(Thymine)
- Q(Guanine) = Q(Cytosine)
Parmi les réactions utilisées par Kossel dans ses travaux d'analyse élémentaire il y a l'hydrolyse, réaction qui scinde une molécule (N.d.A. : en rompant une liaison covalente par ajout d'une molécule d'eau). En effet, les bases azotées forment des liaisons chimiques avec d'autres composants, dont du phosphate.
Phoebius Levene poursuivit ces travaux de Kossel, en déterminant que les bases azotées sont attachées à deux autres composants.
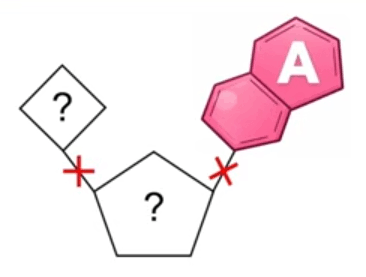
Levene a non seulement isolé les bases azotées mais a également isolé et identifié les deux autres composants : un type de sucre appelé désoxyribose, et de l'acide phosphorique.
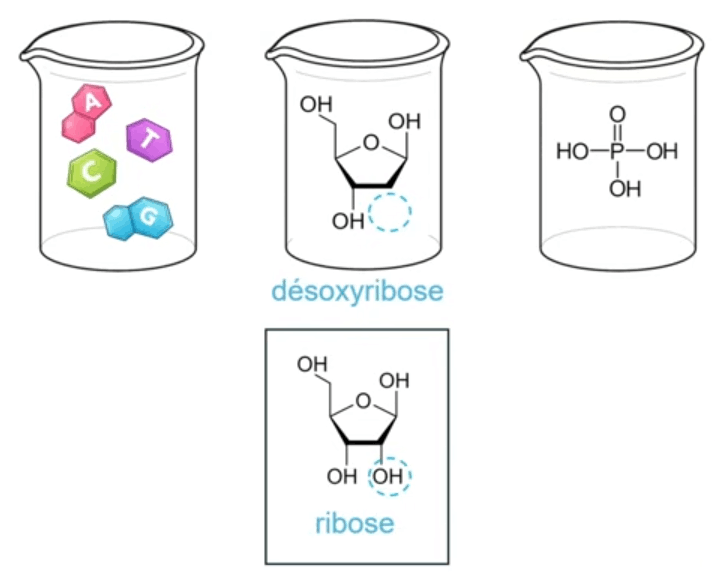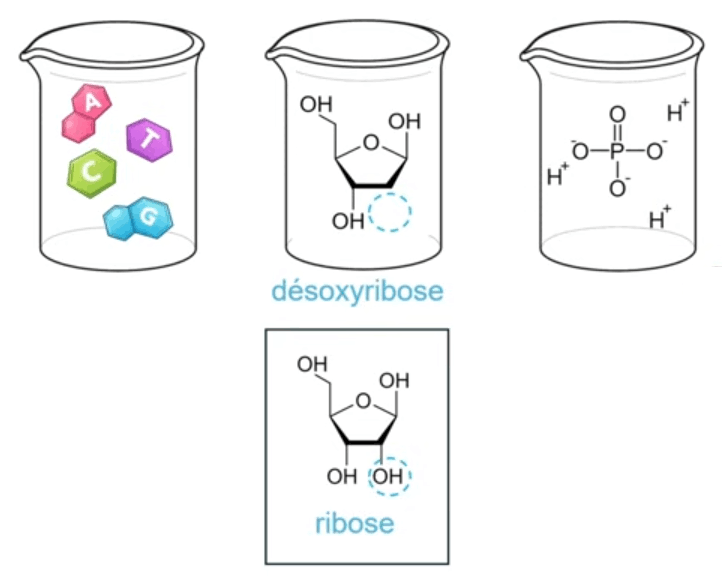
• Le désoxyribose ressemble à cet autre sucre qu'est le ribose, mais avec un groupement OH en moins.
• L'acide phosphorique identifié correspond au phosphate identifié par Miescher : quand l'acide phosphorique perd ses H+ on obtient un phosphate (cf. animation ci-dessus).
Levene a donc montré que les bases azotées sont liées à un sucre (désoxyribose) lié à un groupement phosphate.
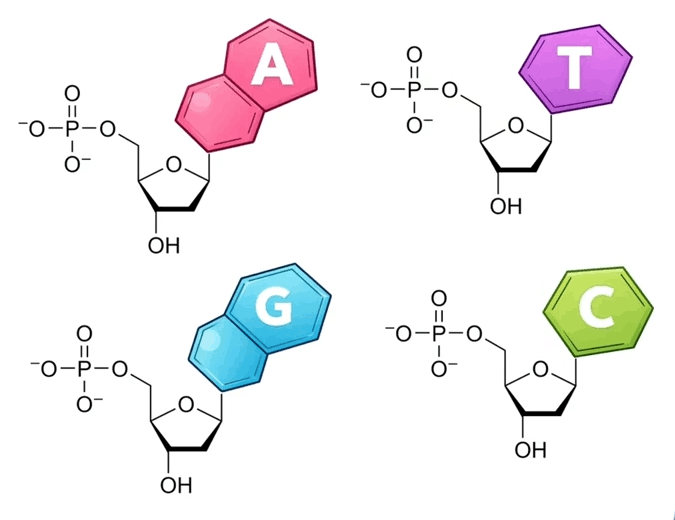
Ces molécules sont appelées nucléotides. Il y en a donc quatre différents : un par base azotée. Le schéma suivant montre qu'un nucléotide comporte :
- une base azotée ;
un désoxyribose : la seule différence avec la molécule isolée est qu'un groupement OH est remplacé par la base azotée, et qu'un autre groupement OH est remplacé par le groupement phosphate ;
- un groupement phosphate.
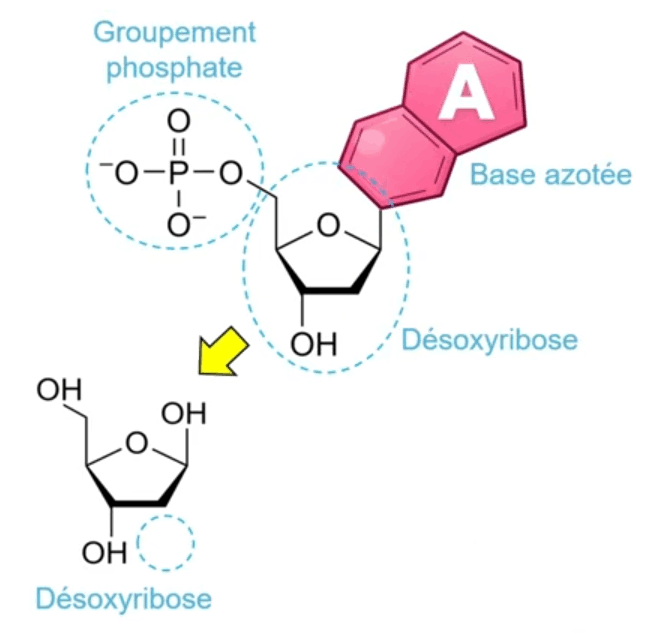
Levene a également montré que les nucléotides se lient facilement entre eux, en remplaçant le groupement OH par le groupement phosphate d'un autre nucléotide. Ce groupement phosphate forme ainsi la liaison entre deux nucléotides, appelée liaison phosphodiester.
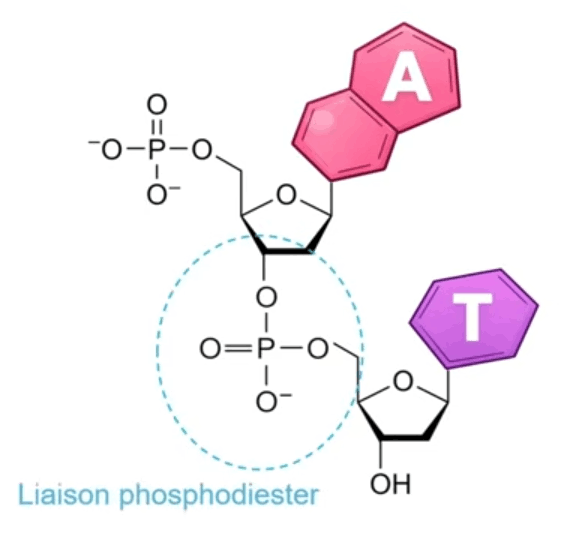
Les nucléotides peuvent ainsi former différentes chaînes différant selon l'ordre des nucléotides. Ces chaînes de nucléotides sont appelées acides nucléiques. "Acides" car les groupements phosphates des chaînes sont dérivés d'acides phosphoriques sous forme de phosphates, lesquels peuvent parfois récupérer un H+ qui pourra être très facilement relibéré. Cette facilité à libérer un H+ est la définition/propriété même d'un acide.
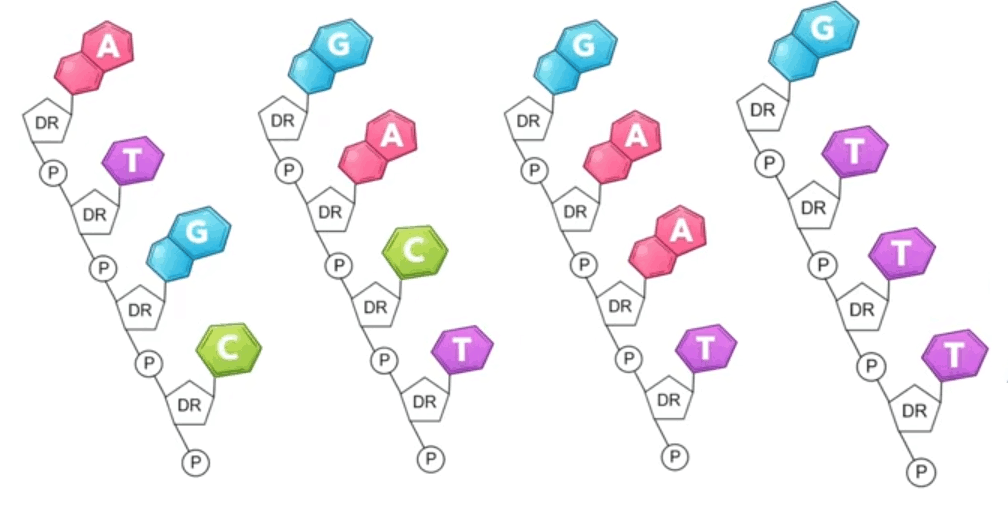
Quelques exemples de chaînes de nucléotides.
C'est pour cette raison que le phosphate, et partant la chaîne de nucléotides, ont un caractère acide.
Mais pourquoi la chaîne de nucléotides n'est-elle pas basique, alors qu'elle contient des bases azotées ? Une base est une espèce capable de capter facilement un H+. La base azotée à la droite du schéma suivant a un atome d'azote qui pourrait capter un H+, tout comme l'ont fait ses deux autres atomes d'azote. En fait, le groupement phosphate (à gauche) a beaucoup plus tendance à libérer un H+, que la base azotée a tendance à en capturer un. Autrement dit, le caractère acide du phosphate est beaucoup plus marqué que le caractère basique de la base azotée. Et c'est donc pour la même raison que la chaîne de nucléotides a globalement plutôt un comportement acide que basique.
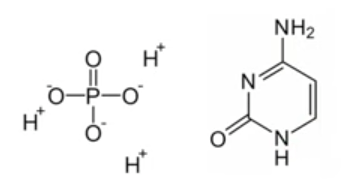
On parle donc d'acides nucléiques, et plus précisément d'acides désoxyribonucléiques (car leur sucre est un désoxyribose) ou ADN. Ces chaînes (ou "brins") de nucléotides peuvent être très longues.
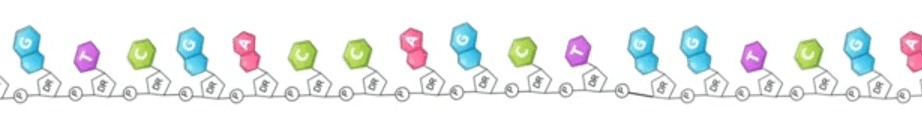
Dans la prochaine leçon, nous verrons que :
l'ADN se structure en deux brins formant une double hélice.
dans le noyau, les doubles hélices d'ADN s'organisent avec des protéines pour former des structures appelées chromosomes.
Chromosomes
Dans cette leçon, nous allons voir que les chromosomes sont des structures microscopiques présentes dans les cellules. On distingue deux types de cellules :
cellules procaryotes : sans noyau, et dont le matériel génétique se résume à un seul double-brin d'ADN circulaire, compacté en une sorte de pelote, baignant directement dans le cytoplasme ;
cellules eucaryotes : avec noyau, et dont le matériel génétique s'organise (dans le noyau) de manière plus complexe, sous la forme de chromosomes.
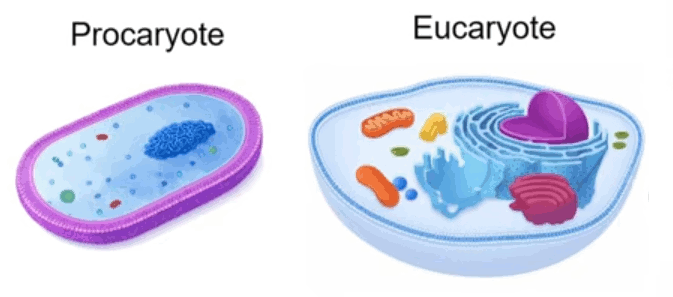
Au XIX° Walther Flemming étudiait la division cellulaire. En trempant du tissus animal dans de l'acide chromique, il stoppait l'activité cellulaire, ce qui lui garantissait d'en obtenir un instantané (les chromosomes cellulaires ne sont visibles qu'à un instant précis du cycle cellulaire). Il découpait ensuite de très fines lamelles (10 μm, soit le même ordre de grandeur que certaines cellules) au moyen d'un microtome.
Le résultat au microscope n'étant pas très visible, Flemming a utilisé un colorant particulier qui est absorbé par les structures cellulaires, ce qui permet de les faire apparaître plus distinctement.
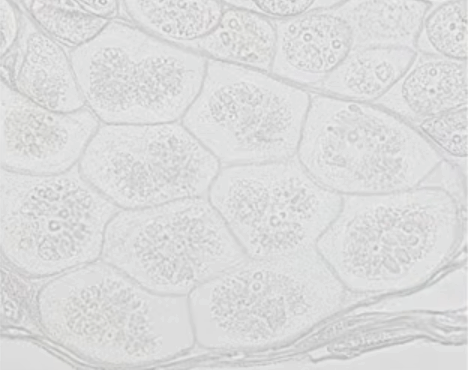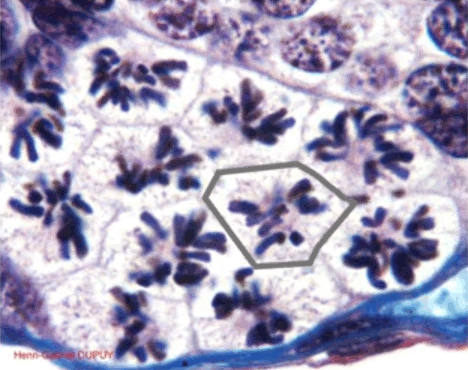
Sur l'image de la cellule colorée, une cellule est mise en évidence en sur-imprimant une ligne correspondant à sa membrane.
Les structures mauves qui apparaissent ci-dessus sont précisément les chromosomes.
Le mot "chromosome" vient du grec ancien "chroma" (couleur) et "soma" (corps).
Soulignons que les chromosomes ne sont facilement visibles qu'à un instant précis du cycle cellulaire. Nous reviendrons plus loin sur ce cycle. Pour l'instant, observons dans l'image suivante cette cellule de racine d'oignon, où apparaît plus clairement la forme en bâtonnets des chromosomes.
Le microscope électronique révèle ainsi deux bâtonnets (appelés chromatides soeurs), se rejoignant en une région particulière (appelée centromère). Nous verrons qu'à un certain stade du cycle cellulaire, ces bâtonnets se détachent.
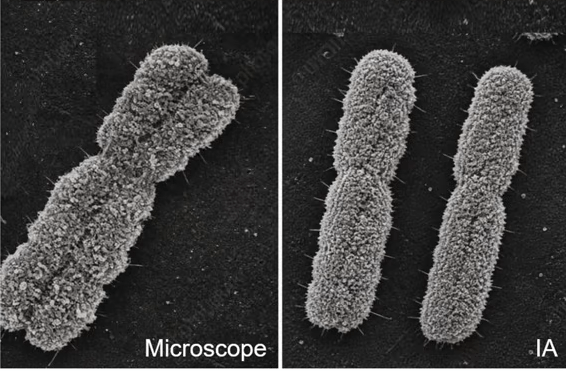
Flemming a ainsi pu mettre en évidence que juste avant la division cellulaire, le noyau se brise pour libérer les chromosomes dans le cytoplasme de la cellule.
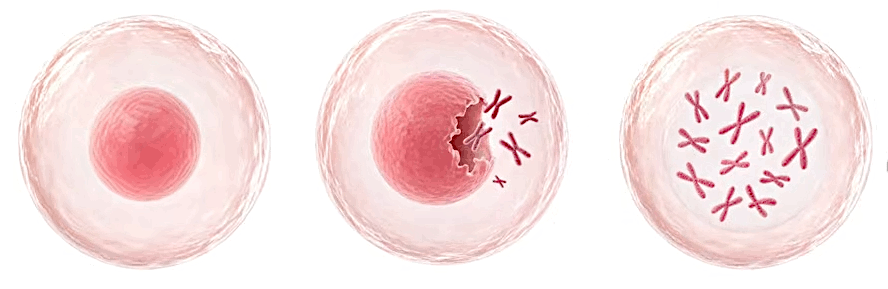
Quand ils sont dans le noyau, les chromosomes n'ont pas cette forme en X. Le noyau contient en fait de la chromatine, sorte de filaments constituant des zones plus ou moins denses.
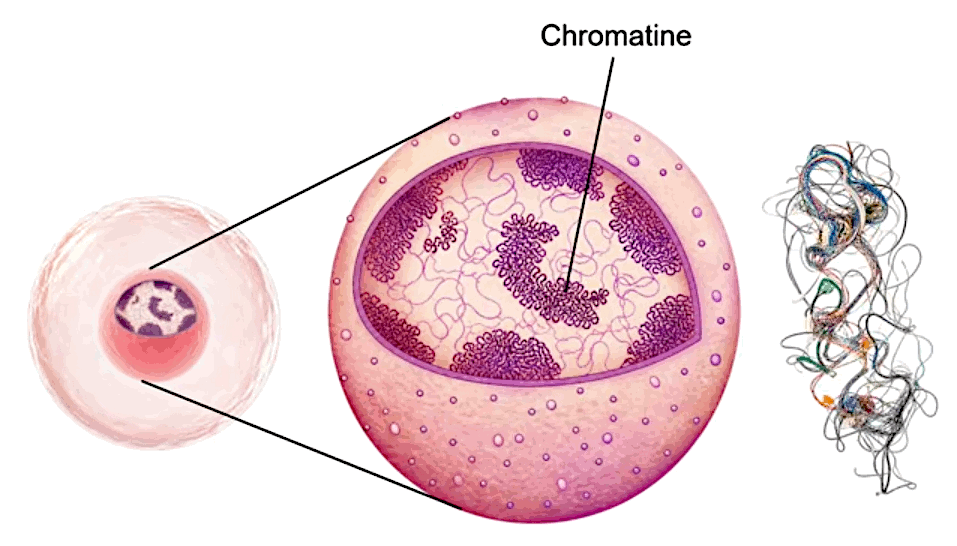
Ces filaments sont constitués d'ADN : la chromatine est en fait constituée de doubles brins d'ADN, qui s'entourent autour de complexes protéiques, appelés octamères, car composés de huit histones de protéines. Un octamère d'histones, quand il est entouré d'un double brin d'ADN, constitue un nucléosome.
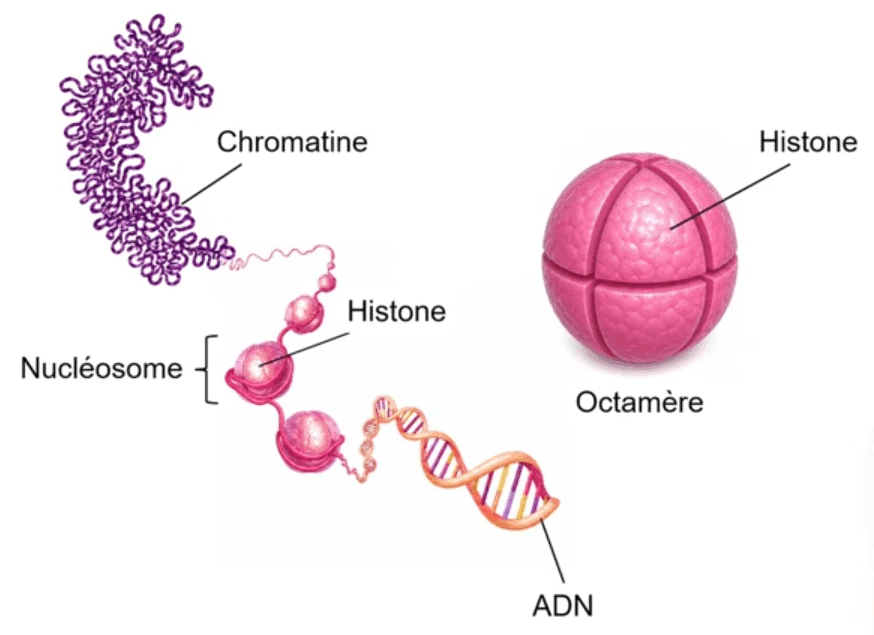
La chromatine est donc composée de plusieurs double-brins d'ADN, sortes de colliers de perles (les histones, qui sont des protéines), chaque double brin constituant un filament plus ou moins compacté.
À un certain stade du cycle cellulaire, les doubles brins d'ADN sont copiés, grâce à un mécanisme cellulaire appelé réplication, qui permet à chaque cellule d'obtenir une copie conforme de chaque double brin. On verra dans une prochaine leçon qu'il s'agit d'un phénomène complexe faisant intervenir plusieurs protéines. Il y a notamment une protéine qui permet d'ouvrir la double hélice d'ADN, et une autre protéine pour fabriquer un autre brin qui s'associe au brin préexistant. C'est ainsi que la cellule obtient une copie conforme de chaque double brin d'ADN, ou autrement dit, de chaque filament constituant la chromatine.
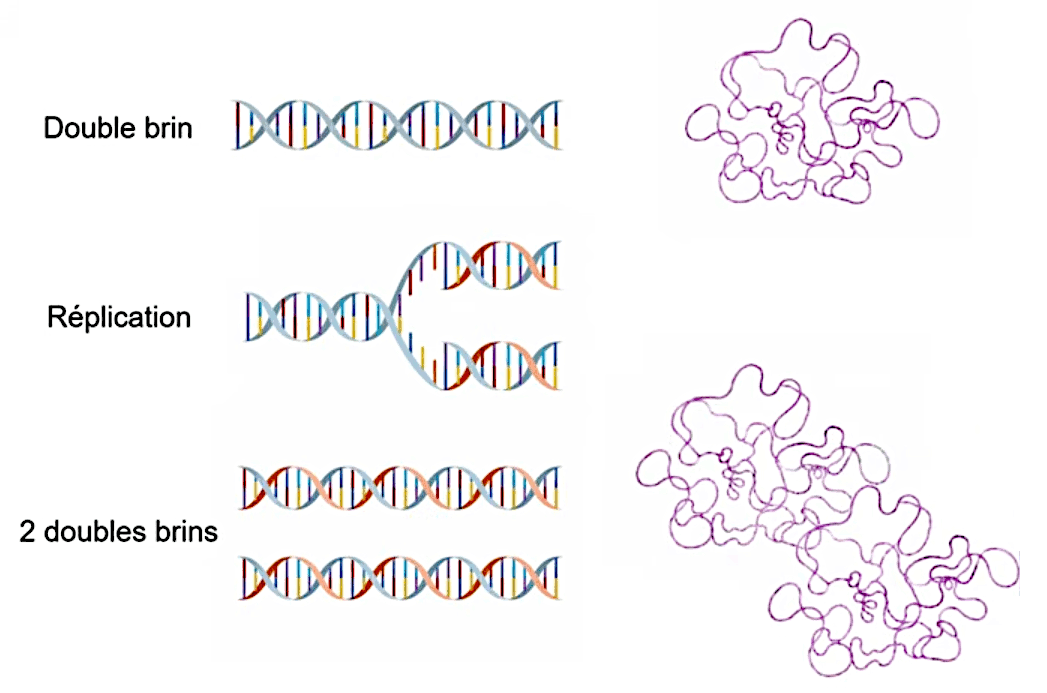
Après la réplication, deux filaments identiques sont attachés à certains endroits grâce à des protéines particulières (en bas à droite ci-dessus).
Chaque filament se retrouve donc avec sa copie, puis ces filaments se condensent, pour prendre la forme de chromosomes.
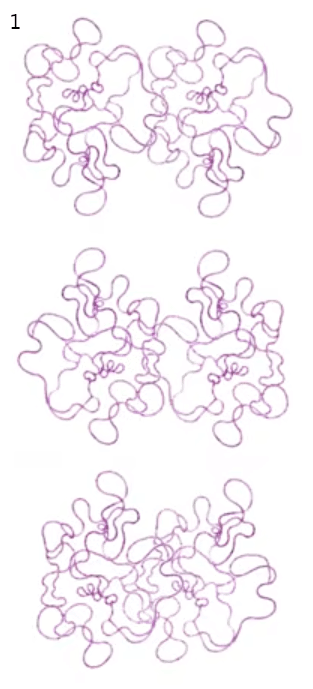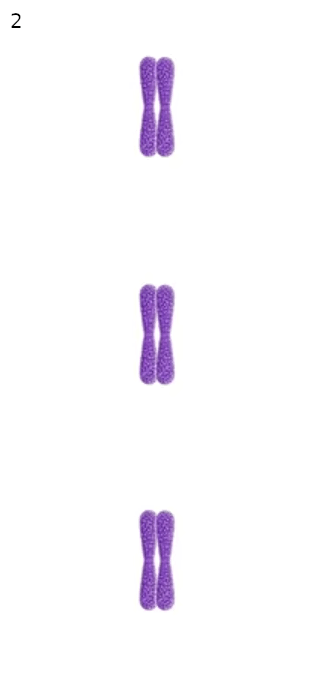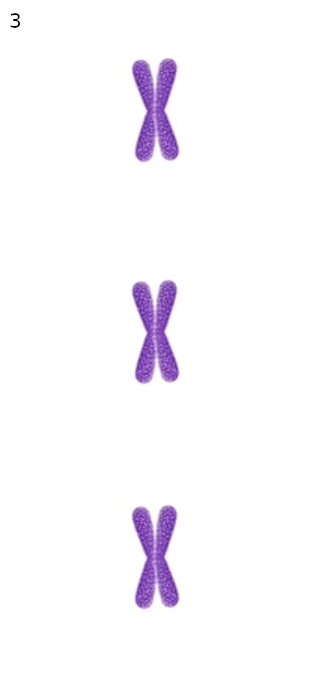
La taille de chacun de ces chromosomes est d'environ 1 µm (1 micromètre, soit 1 millionième de mètre).
Ainsi, dans un chromosome répliqué, une chromatide est constituée d'un double brin d'ADN, et la chromatide sœur correspondante contient un double brin identique.
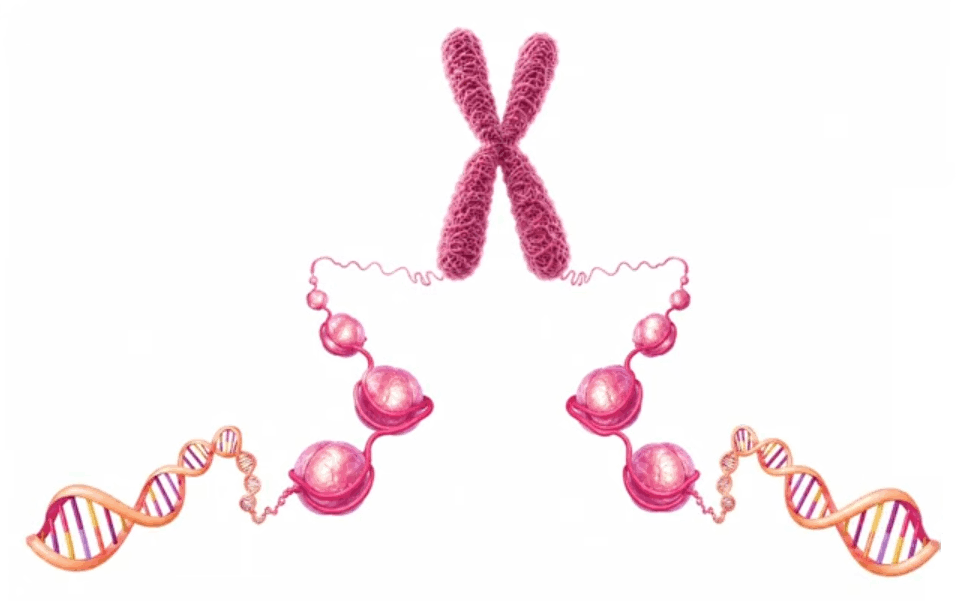
La chromatide, c'est de la chromatine condensée. Et un chromosome contient une chromatide (avant réplication) ou deux chromatides (après réplication).
Dans une prochaine leçon nous verrons que le moment où la chromatine se condense sous forme de chromosome correspond au début de la mitose, c-à-d la division cellulaire qui permet la production de deux cellules filles identiques c-à-d qui ont le même matériel génétique. Nous verrons que les chromatides soeurs de chaque chromosome se séparent pour migrer chacune vers une cellule fille. Ainsi les deux cellules filles ont le même matériel génétique.
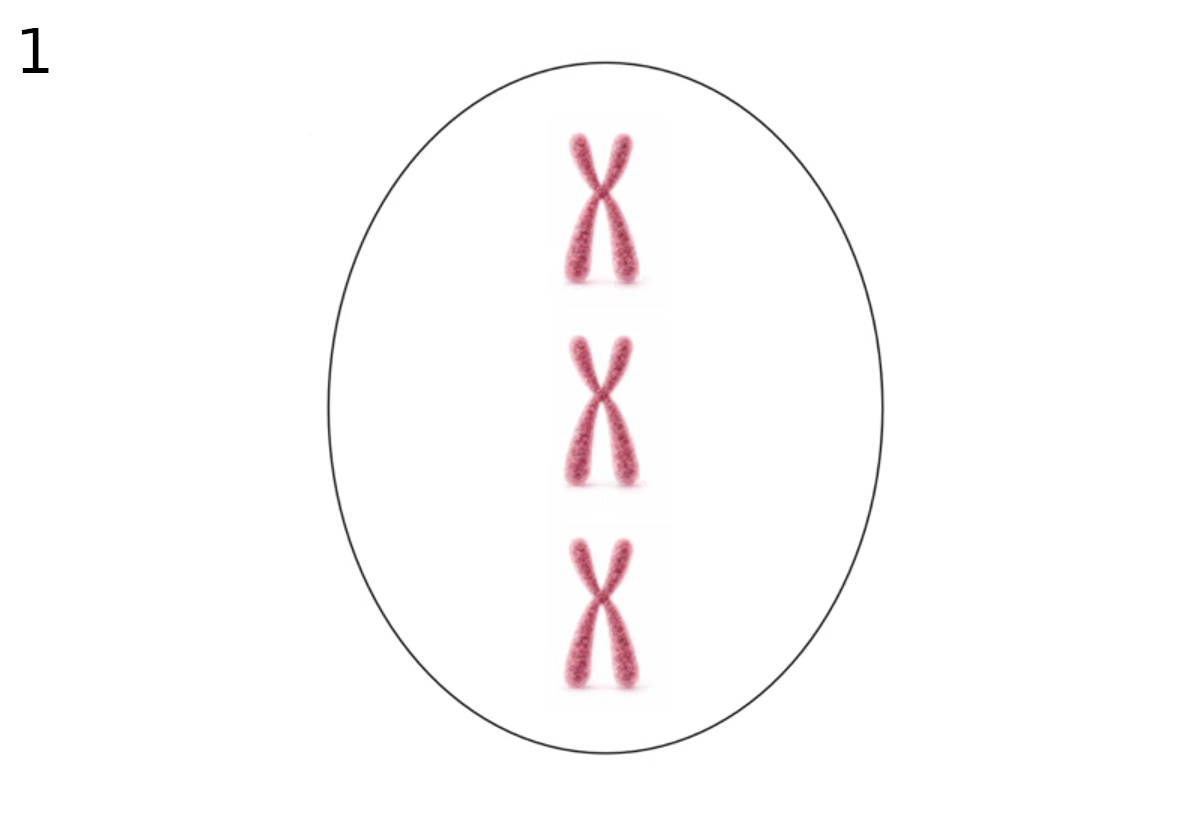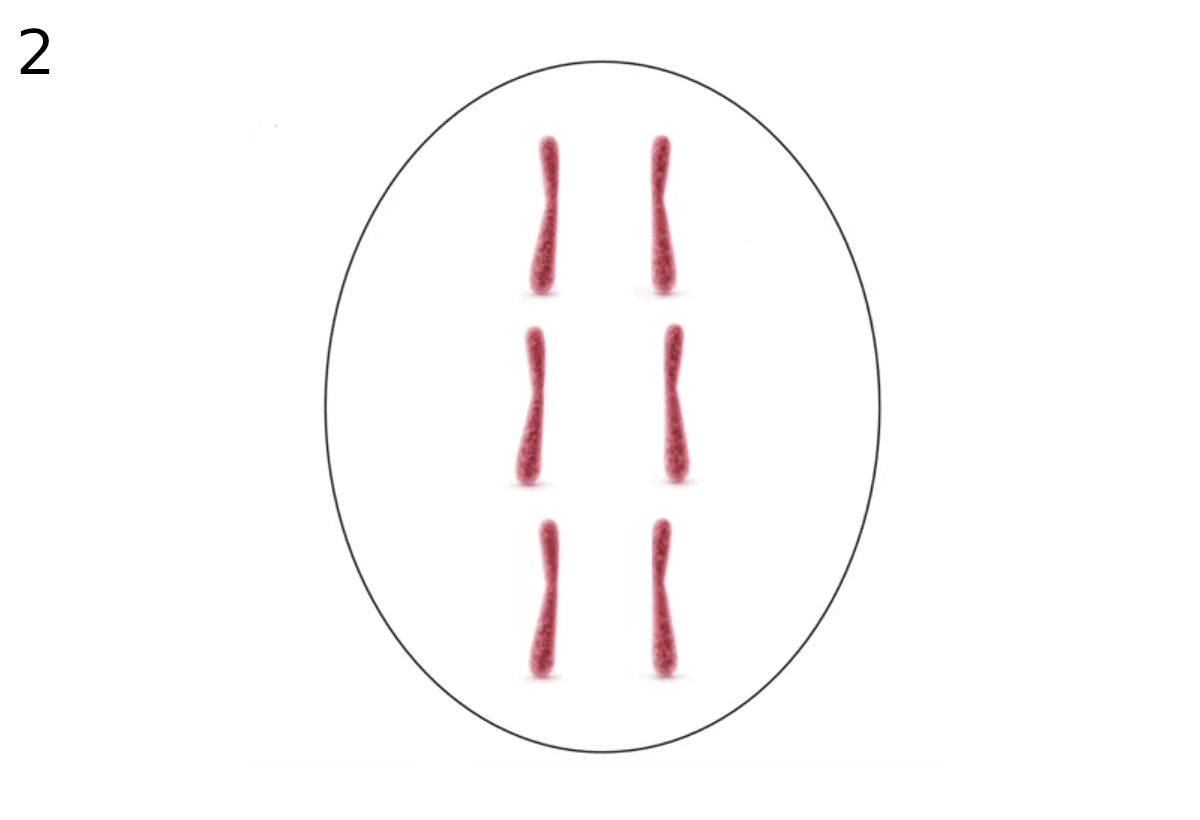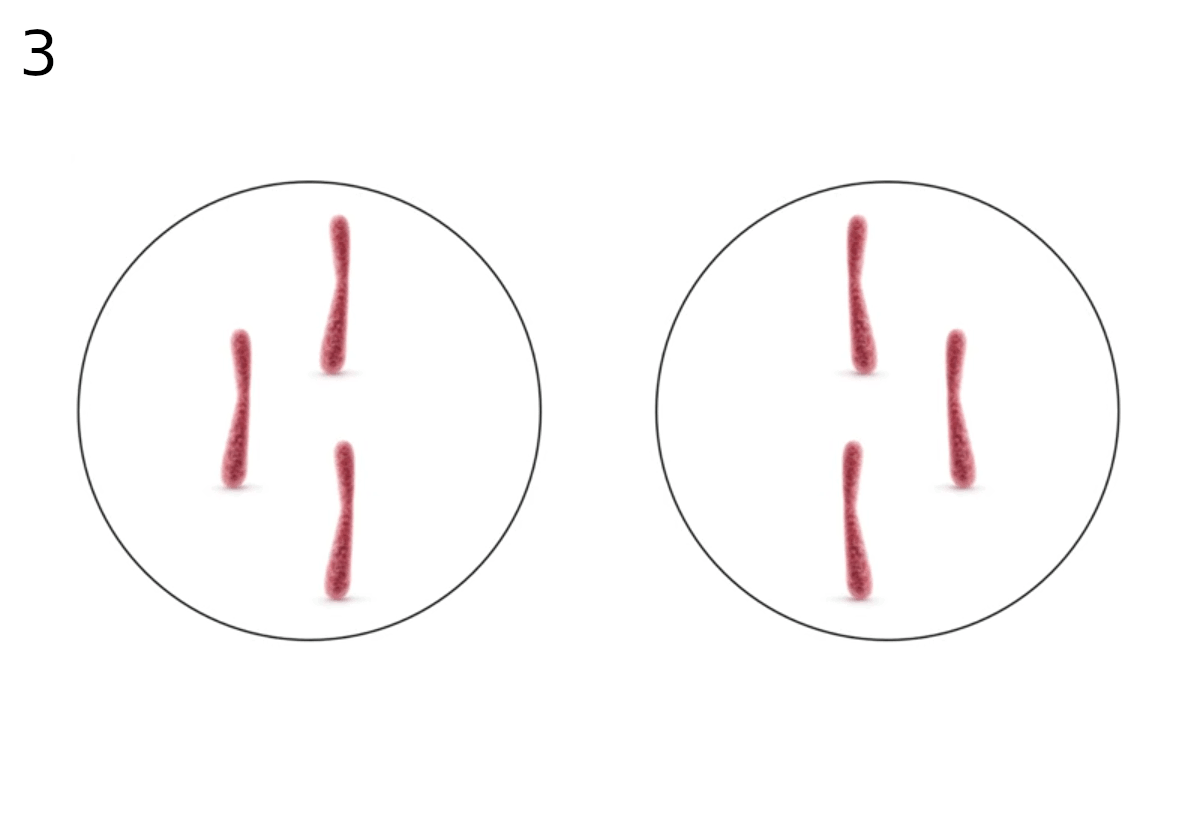
Dans chacune des deux cellules soeurs un noyau va se former et les chromatides vont se décondenser pour se remettre sous forme de chromatine à l'intérieur du noyau.
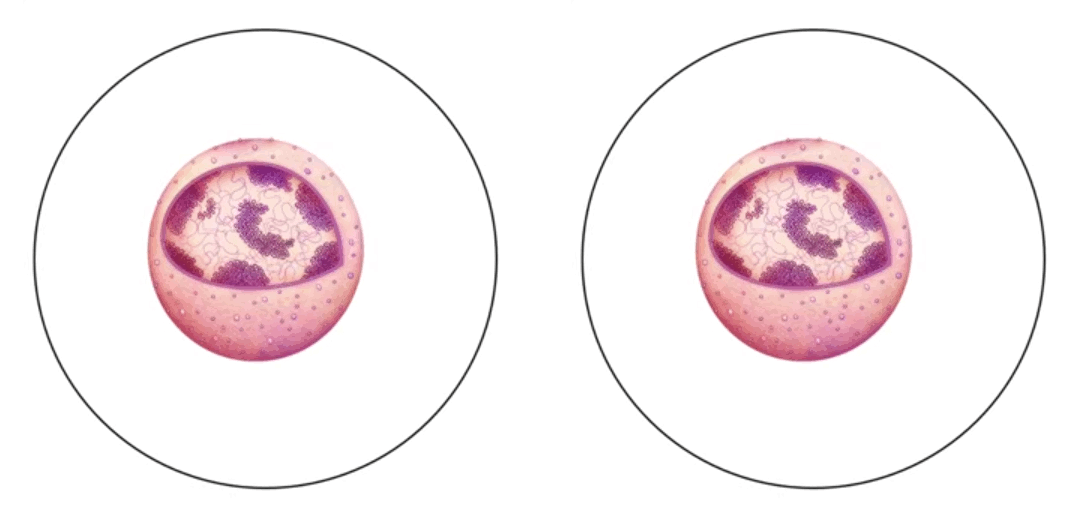
Addendum (N.d.A.) :
La forme en X représente un chromosome répliqué et condensé, et non la forme universelle d'un chromosome. Les chromosomes sont présents tout au long du cycle cellulaire, mais leur degré de condensation varie. Ils sont particulièrement faciles à distinguer au microscope lorsqu'ils sont fortement condensés pendant la mitose.
La réplication est semi-conservative : chaque molécule fille contient un brin parental et un brin nouvellement synthétisé.
Dans une prochaine leçon nous verrons que :
les chromosomes peuvent être classés par paires, selon leurs similarités morphologiques et selon leur taille (caryotype).
chaque espèce possède un nombre caractéristique de chromosomes (et donc un nombre caractéristique de paires de chromosomes. Ainsi chez l'homme il y a 46 chromosomes, mais comme il vont par paires, il y a donc 23 paires de chromosomes chez l'homme.
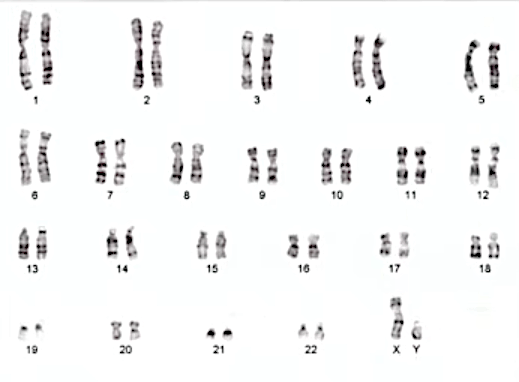
Reproduction
2. Chromosomes sexuels
Introduction
Voici une cellule animale eucaryote. L'ADN se trouve dans le noyau (en violet dans l'image ci-contre) généralement sous forme diluée (chromatine).

Cellule animale. Orange : Mitochondries.
Cependant, dans certaines phases de la reproduction cellulaire apparaissent dans le noyau des chromosomes (ADN enroulé autour de protéines), dont le caryotype humain est composé de 22 paires de chromosomes, plus une paire XY (garçon) ou XX (fille).

Caryotype chromosomique humain
Nous avons vu que la reproduction cellulaire se fait par mitose c-à-d que les cellules séparées sont des duplications exactes de la cellule souche. Cependant les cellules dites "sexuelles" (gamètes), c-à-d impliquées dans la reproduction sexuée, se divisent par méiose, c-à-d que les cellules séparées contiennent chacune un des deux brins des chromosomes de la cellule souche : les gamètes mâles et femelles qui interviennent dans la reproduction sexuée ne reçoivent donc qu’une seule copie de chaque chromosome. En conséquence, lors de la fusion entre les gamètes mâle et femelle, un génome diploïde est reconstitué.

Les cellules non sexuelles sont diploïdes (chromosomes appariés) tandis que les gamètes sont haploïdes (chromosomes non appariés).
Après la reproduction des cellules, passons maintenant à celle des individus qu'elles constituent. Dans le cas de reproduction sexuée (cas des humains) un individu de sexe "mâle" se reproduit avec un individu de sexe "femelle" par fusion de cellules sexuelles (spermatozoïdes du mâle avec ovules de la femelle). Après fécondation d'une gamète femelle (ovule) par une gamète mâle (spermatozoïde), les chromosomes mélangés se recombinent, de sorte qu'il n'est plus possible de distinguer ce qui provient du père de ce qui provient de la mère.

Le fait que les enfants sont différents des parents favorise la vitesse de l'évolution et atténue l'impact d'éventuelles défaillances chromosomiques d'un des parent (les chromosomes provenant de l'autre parent pouvant alors y suppléer).
Notons enfin que l'on trouve de l'ADN ailleurs que dans le noyau des cellules. On en trouve également dans leurs mitochondries, qui constituent leur système respiratoire et énergétique des cellules. Ces organites cellulaires seraient des bactéries primitives (les bactéries contiennent également de l'ADN en boucles) qui ont été intégrées aux cellules par symbiose (association intime et durable entre deux organismes d'espèces différentes).
Chromosomes sexuels
Dans la leçon précédente nous avons évoqué la mitose c-à-d la division d'une cellule, produisant deux cellules filles identiques, qui ont donc le même matériel génétique que la cellule mère.
La méiose est aussi un processus de division cellulaire, mais de cellules dites germinales, et produisant des cellules reproductrices, appelées gamètes. La méiose est réalisée dans les organes reproducteurs, appelés gonades.
Gonades et gamètes des mammifères (et de certains insectes)
| Mâles | Femelles | |
|---|---|---|
| Gonades | Testicules | Ovaires |
| Gamètes | Spermatozoïdes | Ovules |
La fécondation est la fusion d'un spermatozoïde et d'un ovule. Elle forme d'abord une cellule-œuf (ou zygote), qui deviendra ensuite un embryon après plusieurs divisions cellulaires.
Si les chromosomes sont visibles c'est le signe que le noyau de la cellule s'est brisé et que la chromatine s'est condensée pour ainsi former des chromosomes. Pendant la méiose, ces chromosomes s'alignent, tout en se mettant par paires.
Ce n'est pas très visible sur l'image, mais les paires sont semblables en termes de longueur des bras et de localisation du centromère.
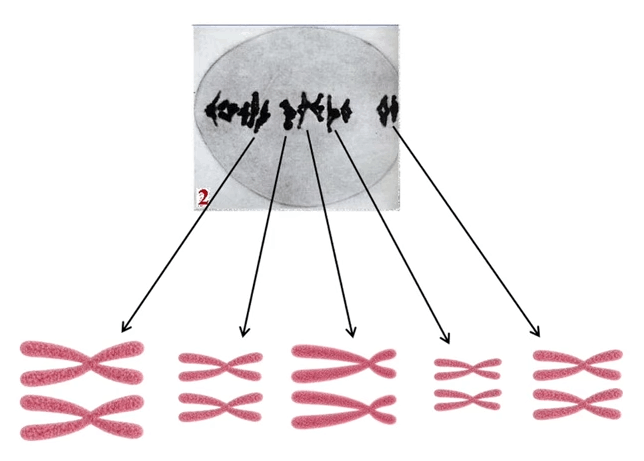
Au début du XXe siècle, Nettie Stevens découvrit que chez l'humain et de nombreux animaux, les individus mâles et femelles ne se distinguent pas uniquement par leurs gamètes et gonades, mais aussi par la présence d'une paire de chromosomes sexuels, appelée XY chez les mâles (car Y est beaucoup plus petit, donc différent), et XX chez les femelles.
Lors de la création d'un embryon, la présence du chromosome Y entraîne l'embryon vers le développement d'organes reproducteurs masculins, tandis que son absence (et donc la présence d'un second chromosome X) entraîne le développement d'organes reproducteurs féminins.
On distingue donc deux types de paires de chromosomes :
les paires d'autosomes (chromosomes non sexuels) : impliquées dans le développement et le fonctionnement de l'organisme ;
la paire de chromosomes sexuels : impliquée notamment dans le développement des organes reproducteurs, mâles ou femelles.
Génétique (lois de Mendel)
La génétique est la science des caractères héréditaires, c-à-d qui se transmettent d'une génération à l'autre, via la reproduction d'enfants par des parents. La génétique étudie :
- les modes de transmission entre générations
- les modes d'expression des gènes sur un individu.
Les chromosomes (rappel : un chromosome est une molécule d'ADN enroulée autour de protéines), jouent un rôle central dans la transmission ainsi que l'expression des gènes.
Au XIX° siècle Mendel a pu constater expérimentalement – en l'occurrence sur la couleur des pois – ce que nous appelons aujourd'hui "lois de Mendel" ou encore "lois de l'hérédité". Celles-ci permettent d'expliquer :
- qu'un croisement entre pois vert et jaune donnera 100% d'enfants jaunes ;
- qu'un croisement entre deux de ces enfants jaune donnera 75% d'enfants jaunes et 25% de verts.

Pour expliquer théoriquement ce phénomène empirique, la théorie de Mendel postule :
- que chaque enfant reçoit de ses parents des données génétiques potentielles appelées "allèles" (ou encore "gènes"), sous forme d'une paire d'allèles, appelée génotype (en l'occurrence un génotype "couleur" : cf. les doubles cases de l'image ci-contre)." ;
Le génotype est également appelé "composition allélique du gène".
- qu'un allèle peut être dominant (ici le jaune, symbolisé par un J majuscule) ou récessif (ici le vert, symbolisé par un v minuscule), c-à-d que dans un génotype mixte l'allèle dominant l'emporte ; on appelle "phénotype" (du grex "phaínô" signifiant "montrer") l'allèle qui est physiquement exprimé c-à-d dont la potentialité est réalisée.

Sur la base de ces deux postulats on peut alors établir un tableau illustrant toutes les génotypes possibles, c-à-d toutes les combinaisons possibles d'allèles, concernant la génération issue de parents du génotype mixte. Il apparaît alors qu'apparaissent effectivement 3/4 de caractères dominants et 1/4 de récessifs, ce qui confirme la pertinence des postulats.

On peut ainsi déduire les génotypes (les cases de l'image ci-contre) à partir des phénotypes. Imaginez que dans l'image ci-contre toutes les cases sont vides ⇔ n'apparaissent que les phénotypes. Partons du phénotype vert de la génération zéro :
(1) vu que le vert est récessif, alors le génotype du parent vert est nécessairement (v,v), (dit "pur" par opposition à "mixte") ;
(2) ⇒ tous les enfants ont nécessairement un allèle vert (puisque chaque parent transmet un des ses allèles) ;
(3) or ces enfants sont de phénotype jaune ⇒ leur second allèle est nécessairement jaune (qui est dominant) ;
(4) ⇒ comme 100% des ces enfants ont l'allène jaune, c'est donc que le parent dont il provient est de phénotype (J,J) plutôt que (J,v) ;
(5) enfin les parents de la dernière génération ayant le même génotype mixte (v,J), on retrouve les quatre génotypes possibles chez leurs enfants, auxquels correspondent bien les proportions 75%-25% des phénotypes.

Notons que l'on détermine l'allèle dominant par l'observation. Ainsi les statistiques montrent que les yeux de couleurs foncées sont dominants ⇔ les yeux de couleurs claires sont récessifs.
(1) comme le bleu est récessif, le génotype du parent bleu est nécessairement (b,b) ;
(2) comme le brun est dominant, le génotype du parent bleu peut être (b,B) ou (B,B) ;
(3) supposons le cas (b,B) ⇒
| b | b | |
|---|---|---|
| b | bb | bb |
| B | Bb | Bb |
(4) supposons le cas (B,B) ⇒
| b | b | |
|---|---|---|
| B | Bb | Bb |
| B | Bb | Bb |
N.B. La présente synthèse incorpore l'erratum ajouté par Clipedia en-dessous de la vidéo.
Nous venons d'évoquer le modèle dit "de dominance". Cependant celui-ci ne permet pas d'expliquer que des parents possédant des phénotypes purs différents (par exemple un perroquet au plumage bleu, avec un autre au plumage jaune) donnent des enfants présentant un mélange (on dit aussi "simultanéité") de phénotypes. Il faut pour cela introduire la notion de codominance, dont on pourrait à priori distinguer deux types :
- codominance mixte : plumes bleues avec plumes jaunes ;
- codominance fusionnée : plumes vertes.
Malheureusement la dénomination scientifique n'est pas celle-là, et sème plutôt la confusion :
- la codominance mixte est appelée codominance ;
- codominance fusionnée est appelée dominance incomplète.
Et qu'en est-il des mélanges non équilibrés ? :
- plus de plumes bleues que de plumes jaunes ;
- un vert tournant plus vers le bleu.
La vidéo évoque cette situation, mais ne mentionne aucune approche théorique pour la modéliser. Ces remarques étant faites, poursuivons l'étude des lois de Mendel ...
La première loi de Mendel stipule « l'uniformité génotypique (génotypes identiques pour les 4 cases du tableau des combinaisons) des hybrides de première génération, issus de parents de génotypes purs (c-à-d AA avec bb ou AA avec BB) » :
"Dominance en F1" : AA avec bb donne 100% de génotypes Ab (⇒ phénotype A) :
F1 A A b Ab Ab b Ab Ab On utilise souvent le terme "Fx" (F pour fécondation) en place de "x-ième génération".
"Codominance en F1" : AA avec BB donne 100% de génotypes AB (⇒ phénotype mélangé) :
F1 A A B AB AB B AB AB
La seconde loi de Mendel, appelée "loi de disjonction des caractères", stipule que F2 présente les génotypes de F1 et F0, dans des proportions déterminées.
"Dominance en F1" : Ab avec Ab donne AA(25%)+Ab(50%)≡A(75%) et bb(25%)≡b(25%) :
F2 A b A AA Ab b Ab bb Analyse : le phénotype b, qui avait disparu en F1, réapparaît (pour 25%) en F2.
"Codominance en F1" : AB avec AB donne AA(25%)≡A, BB(25%)≡B et AB(50%)≡AB :
F2 A B A AA AB B AB BB Analyse : la codominance, qui était généralisée en F1, partage en F2 50% des enfants avec les deux dominances en parts égales.
Analyse globale : les deux génotypes purs (et donc les phénotypes) de F0 sont présents en F2.
Nutrition
2. Nutriments
3. Apports journaliers recommandés
4. Qualité protéique
5. Renouvellement protéique
6. Digestion des protéines
Métabolisme
On entend par "métabolisme" (du grec "metabolê", qui signifie "transformation"), l'ensemble des réactions chimiques qui se déroulent au sein d'un organisme vivant et lui permettent de subsister, interagir avec l'environnement, réagir à des stimuli, ou encore se reproduire.
Pour agir, c-à-d exercer des forces sur son environnement (dont lui-même, lorsqu'il s'agit de se mouvoir, réfléchir ou stabiliser sa température corporelle), l'organisme vivant doit consommer de la matière et de l'énergie, c-à-d en ingérer la partie utile et en excréter la partie dégradée (urines, selles, transpiration, ...).
C'est par l'alimentation qu'est assimilée la plupart de la matière et de l'énergie nécessaire au métabolisme. On peut donc en conclure que "nous somme ce que nous mangeons".
Équilibre. La proportion des aliments ingérés est déterminante car :
• à doses trop élevées les minéraux (cf. supra) peuvent être toxiques pour l'organisme ;
• à doses trop faible on parle de carences ;
⇒ notions d'alimentation équilibrée ("un peu de tout") et d'apport journalier recommandé (AJR) par élément.
| Élément | Carence | Excès | AJR |
|---|---|---|---|
| Fe | Anémie | Troubles digestifs | 10 mg |
| F | Caries | Troubles rénaux | 2,5 mg |
| I | Retard mental | Hyperthyroïdie | 150 µg |
| Mn | Troubles circulatoires | ? | 1-2 mg |
| Zn | Fatigue | Déficit en Cu | 10 mg |
| ... | ... | ... | ... |
Les AJR sont mentionnés sur la plupart des emballages des aliments industriels (NB : le lecteur attentif aura remarqué que la somme des pourcentages mentionnés est généralement très inférieure à 100% : la part manquante correspond à l'eau contenue).
Nutriments
Les produits alimentaires sont composés de divers types de matière :
- glucides, aussi appelés hydrates de carbone (dont les sucres, l'amidon de la farine, et la cellulose des végétaux, ...) ;
- lipides, aussi appelés matières grasses, dont le beurre, l'huile des oléagineux, et les phospholipides constitutifs des membranes biologiques ;
- protides, aussi appelés protéines, que l'on trouve sous de nombreuses formes :
- keratine : longues chaînes protéiques constitutives des cheveux ;
- protéines assurant la dynamique musculaire ;
- hémoglobine : molécule de transport qui transporte l'oxigène des poumons vers les organes ;
- insuline : molécule régulant les carences ou excès de certaines substances (dont le sucre) ;
- enzyme : protéine à effet catalyseur (accélération d'une réaction chimique, parfois jusqu'à un facteur 106 !), telle que l'hélicase qui participe à la séparation des brins d'ADN en brisant les liaisons hydrogènes (cf. supra #ADN) ;
La capacité de certaines enzymes de briser les chaînes de protéines en fait de bons adjuvants aux lessives pour dissoudre des tâches d'oeuf ou de vin.
- etc ... il y en a des milliers dans nos cellules.
Les résidus sec du lait (12% du lait) sont composés en proportions relativement équivalentes de ces trois types de matière, ce qui en fait un aliment particulièrement complet.
D'autre substances sont importantes pour le métabolisme : vitamines, et acides nucléiques (dont l'ADN).
N.d.A. Pourquoi vitamines et acides nucléiques sont-ils classés à part des autres substances participant au métabolisme ?
NB : l'ordre des sections de cette synthèse ne correspond pas à celui de la vidéo.
Apports journaliers recommandés
L'OMS a établi un besoin minimal garantissant les fonctions protéiques : 0,83g par kg corporel par jour. Ainsi un homme de 45 ans, d'un poids de 70kg, mesurant 1m82, et dont le PAL (indice d'activité physique modérément active) vaut 1,6 aura besoin d'un AJR de :
AJR = 70 * 0,83 = 58,1 g de protéine/jour
or le coefficient d'Atwater vaut 4 pour les protéines ⇒
AJR ≈ 58,1 * 4 = 232 kcal protéiques.
Il s'agit là d'une limite basse, la valeur haute recommandée par l'OMS étant fixée à 15% du besoin énergétique total (BET = 2.600 kcal pour cet homme), ce qui donne :
AJR = 2.500 * 0,15 = 390 kcal protéique ≈ 390 / 4 = 97 g de protéines/jour.
La limite maximale (seuil de risque pour la santé) fixée par l'OMS est de 25% du besoin énergétique total.
Un autre indicateur intéressant pour la diététique est le rapport calorico-azoté. On sait que 6,25 g de protéines apporte 1g d'azote (car l'azote représente 16% d'un acide aminé), ce qui fait de la protéine la première source d'azote pour l'organisme.

Or il se fait que ces 6,25 g de protéines ne peuvent être assimilés de manière optimale que si 150 kcal non proétiques (glucides et lipides) sont également assimilés. On estime donc qu'une utilisation optimale des protéines dans l'organisme requiert RCA = kcal non azotées / g protéines ≥ 24.
Pyramide alimentaire

Qualité protéique
On distingue deux sources protéiques :
- les protéines de haute valeur biologique (PHVB) contiennent les neufs acides aminés essentiels, on les retrouve dans : viande, volaille, poissons, oeufs (VVPO) et produits laitiers :
• 100g viande/poisson ≈ 20g protéines ;
• 100ml lait ≈ 4-5g protéines ;
• 100g fromage ≈ 25-30g protéines ; - les protéines de basse valeur biologique (PBVB) ne contiennent pas les neufs acides aminés essentiels, on les retrouve dans : céréales et légumineuses (100g ≈ 8-10g de protéine).
N.d.A. Ces masses doivent être comparées avec l'apport journalier recommandé (AJR), dont nous avons vu dans la section précédente, que la limite haute est d'une centaine de grammes de protéines par jour. Si l'on compare ce chiffre à ceux mentionnés ci-dessus, il en résulte que la limite haute de nourriture (variée) par jour est d'environ 700g.
La qualité protéique c-à-d la valeur biologique d'une protéine, dépend de :
- sa richesse en acides aminés essentiels (AAE) ;
- sa digestibilité.
Pour calculer la qualité protéique l'OMS recommande l'indicateur appelé "score chimique corrigé de la digestibilité de la protéine" :
PDCAAS = teneur en AAE limitant dans la protéine (mg) / besoin en cet AAE * digestibilité
où l'AAE limitant est celui dont la quantité dans la protéine est la plus faible, ainsi :
• les céréales sont limitantes en lysine ;
• les légumineuses sont limitantes en méthionine.
Complémentarité protéique. Supposons un plat composé de viande, féculents et légumes, dans des proportions telles que les apports protéiques journaliers sont répartis comme suit :
• 1/3 de protéines animales (des PHVB) ;
• 2/3 de protéines végétales (des PBVB).
⇒ un régime végétarien (pas de viandes) ou végétalien (aucun produit animal) devra, pour maintenir cet apport protéique journalier, compenser le manque d'AAE qui étaient apportées par les protéines animales :
ainsi 100g de viande (≈ 20g de PHVB) devra être compensé par :
• végétarien : pâtes + oeuf + gruyère
• végétalien : semoule, riz (céréales) + lentilles poids chiche (légumineuses) : céréales et légumineuses compensent leurs manques respectifs en lysine et méthionine.
Renouvellement protéique
Le renouvellement protéique constitue une phénomène central de la digestion. Il s'agit d'un cycle permanent composé de deux phases simultanées :
- la protéosynthèse : synthèse de protéines (+300 g/j) à partir d'acides aminés libres de l'organisme (≈ 70g/j) ;
- la protéolyse : dégradation des protéines corporelles (-300 g/j) pour en refaire des acides aminés libres (≈ 70g/j).

Les acides aminés libres proviennent de l'alimentation (≈ 80g/j), subissent quotidiennement une dégradation irréversible (≈ 80g/j), et sont évacués via urine, selles, transpiration et menstruations .
Dans cette dynamique le bilan azote, c-à-d le différentiel entre apports et pertes azotés, détermine deux situations :
- > 0 ⇔ augmentation de la masse protéique et, partant, de la masse musculaire ;
- < 0 ⇔ fonte musculaire, souvent indice clinique d'une pathologie.
Digestion des protéines
Dans la digestion chimique des protéines, celles-ci sont dégradées par des enzymes qui rompent leurs liaisons, et en font ainsi des acides aminés libres. Ces enzymes peuvent être répartis en trois groupes :
- les endopeptidases (pepsine, trypsine, élastase, chymotrypsine), coupent les liaisons peptidique du centre de la protéine ;
- l'aminopeptidase coupe la fonction amine terminale ;
- la carboxypeptidase coupe la fonction carboxyle terminale.

Cette digestion des protéines se fait en trois grandes étapes, caractérisées par le rôle d'un organe spécifique : estomac ⇒ pancréas ⇒ intestin.
L'estomac sécrète du suc gastrique, qui contient de l'acide chlorhydrique (HCl), du pepsinogène, de la mucine et un facteur intrinsèque. L'effet acidifiant de l'HCl active le pepsinogène en pepsine ⇒ celle-ci va couper les liaisons centrales des protéines.
Après l'estomac, les aliments passent dans le duodénum et jéjunum (deuxième segment de l'intestin grêle), où le pancréas va sécréter son suc pancréatique, qui contient du trypsinogène, chymotrypsinogène, élastase et carboxypeptidase ⇒ les trois premiers enzymes effectuent un nouveau coupage des liaisons situées au centre des chaînes protéiques subsistantes, et la carboxypeptidase coupe la fonction carboxyle terminale ⇒ il ne reste plus que des tripeptides (chaînes protéiques de trois acides aminés) dont une minorité sera absorbée, le reste poursuivant son chemin vers l'intestin grêle, dont les cellules entérocytes de la paroi (muqueuses) sécrètent de l'aminopeptidase et du dipeptidase, qui vont couper les liaisons des tripeptides, les transformant ainsi en acides aminés libres (et quelque dipeptides) qui seront absorbés dans les cellules intestinales d'où elles rejoignent la circulation sanguine ⇒ la veine porte ⇒ le foie, siège de la synthèse protéique.

Jaune : pancréas ; bleu clair : canal sécrétif du pancréas ; beige : intestin.
Système nerveux et cerveau
N.B. En raison des rapides progrès des connaissances en biologie, certaines affirmations de la synthèse ci-dessous font en réalité l'objet de débats au sein de la communauté scientifique.
Le cerveau fonctionne par aires spécialisées : ainsi la vision est gérée par les neurones situés à l'arrière du cerveau, et qui génèrent les images puis les portent à notre conscience. Des zones spécifiques existent également pour les sens du touché, de l'odorat et de l'ouïe.

Le sens du plaisir, étant plus complexe car pouvant être suscité par des activités très diverses (dont l'activité physique : sport, danse, ...), est géré par le système limbique, situé dans la zone basse et centrée du cerveau (cf. image ci-contre). Celle-ci est sa partie la plus archaïque, les couches plus externes étant apparues plus tard dans l'histoire de l'évolution. Le système limbique est ainsi le siège des réactions émotionnelles et instinctives, sur lesquelles la raison aurait peu d'effet.

L'ATV (bleu) relaie le signal vers le noyau accumbens (jaune).
Une zone de cette région basse du cerveau, le noyau accumbens (point jaune de l'image ci-contre), est un ensemble de neurones qui joue un rôle important dans le plaisir (dont le rire), la peur, ou encore l'effet placebo.
Alors que le noyau accumbens contrôle le ressenti, une autre zone intervient dans le mécanisme biologique du plaisir : l'aire tegmentale ventrale (ATV : point bleu), qui assure une fonction de relai. Située au sommet du tronc cérébral, l'ATV est encore plus archaïque que l'accumbens.
N.B. La présente synthèse est une simplification d'une réalité complexe, où d'autres zones sont actives, dont le septum, l'amygdale, ou encore l'hypothalamus [approfondir]. On réduit ici le mécanisme du circuit de la récompense à la seule interaction entre ATV et accumbens.

Système limbique
Lorsque l'ATV est activée par les nerfs des organes sensitifs (bouche, nez, yeux, oreilles, peau,...), elle envoie un signal électrique au noyau accumbens, ce qui active le ressenti de plaisir. Ce relai est assuré de proche en proche via des neurones et un neuro-transmetteurs spécifique : la dopamine (cf. image ci-contre).

Deux modes de représentations de la molécule de dopamine.
Ainsi un goût ou une odeurs sont ressenties comme agréables parce que les cellules sensorielle de la bouche et du nez envoient un signal électrique vers l'ATV, provoquant ainsi chez celle-ci une sécrétion de dopamine, qui va activer le noyau accumbens, et ainsi générer une sensation de plaisir.
Du plaisir est également généré par l'activité physique (dont le sport et la danse). Nous allons voir comment, et pourquoi.
Nous déclenchons une activité musculaire au moyen du cortex moteur, qui est "programmé" pour, en cas de mouvement, envoyer un signal vers l'ATV. Nous sommes ainsi programmés pour éprouver du plaisir à bouger. Ce plaisir nous permet de trouver la motivation pour exercer des activité vitales : bouger, nous alimenter et entretenir des relations avec autrui (coopération, reproduction). Nous allons étudier ici le fonctionnement de ce "circuit de la récompense".

Cortex moteur (rouge).
Lorsque nous bougeons, des neurones du cortex moteur (en vert dans l'image ci-dessous) envoient des neuro-transmetteurs (en l'occurrence de l'acétycholine) vers les neurones de l'ATV (en bleu), via ses axones, terminés par des synapses, qui permettent la la liaison avec l'ATV.

Un neurone du cortex moteur (vert) a prolongé un de ses axones sur un neurone de l'ATV (bleu).
Lorsque les signaux électriques envoyés par les neurones du cortex moteur arrivent dans leurs synapses (en vert dans le schéma suivant), ceux-ci les libèrent des molécules d'acétylcholine (jaune) dans la fente synaptique (espace blanc entre les deux neurones), d'où ils vont se fixer sur les récepteurs (rouge) du neurone ATV (bleu). Cette fixation provoque l'ouverture du récepteur, qui laisse ainsi passer des ions (points noirs) dont des Na+, qui vont ainsi déclencher le potentiel d'action du neurone ATV. Celui-ci envoie ainsi à son tour des signaux électriques, vers ses synapses collés aux neurones du noyau accumbens.

Transfert d'un signal, du synapse vers des récepteurs. Le vecteur du signal est d'abord de l'acétylcholine (jaune), puis des ions sodium (points noirs).
On observe alors le même mécanisme pour la terminaison du neurone ATV sur un neurone du noyau accumbens, sauf que cette fois le neurotransmetteur que le signal électrique va activer dans les synapses des neurones ATV est de la dopamine (en outre ce sont des ions Ca++ qui déclenchent le potentiel d'action du neurone de l'accumbens).
Il y a addiction lorsque ce processus vital qu'est le circuit de la récompense opère en processus pathologique, ce qui peut arriver lorsqu'un individu devient dépendant de substances, comme par exemple la nicotine, un neurotoxique utilisé dans certains insecticides. Voici comment ce processus opère.
Les molécules d'oxygène et d'azote de l'air (O2 et N2), plus les molécules de nicotine (C10H14N2) de la fumée de cigarette, inspirées dans les poumons, se fixent dans les alvéoles des parois pulmonaires (cf. schéma ci-dessous), d'où, en raison de la très petite taille de ces molécules, celles-ci passent au travers des parois pulmonaires, et pénètrent à l'intérieur des vaisseaux sanguins qui entourent les alvéoles. Entraînées par le flux sanguin, les molécules de nicotine sont conduites (en quelques secondes) à l'ATV du cerveau.

Jaune : parois d'une alvéole pulmonaire (coupe) ; rouge : vaisseaux sanguins à la surface de cette parois.
Les capillaires sanguins (en rouge dans le graphique ci-dessous) déversent la nicotine dans le liquide extracellulaire ⇒ dans la fente synaptique où, en raisons de leur similitude avec l'acétylcholine, les molécules de nicotines vont pouvoir se fixer sur les récepteurs des neurones de l'ATP, et ainsi déclencher, selon le processus vu plus haut, l'envoie de dopamine en direction des neurones du noyau accumbens.

Ainsi une activité non vitale pourra générer du plaisir, et d'autant plus facilement que l'obtention de cigarettes est chose aisée. L'effet pathologique apparaît alors rapidement : une sollicitation intense et régulière des récepteurs dopaminergiques accélère leur vieillissement puis disparition progressive, de sorte que pour maintenir un même niveau de plaisir (N.d.A. : plaisirs de toutes sortes c-à-d pas seulement celui lié à la cigarette ?), l'individu dépendant devra augmenter ses doses. Cet effet boule de neige aggrave la pathologie en raison des effets secondaires nuisibles de la cigarette (destruction de la vitamine C ⇒ du collagène du derme ⇒ accélération du vieillissement de la peau ; athérosclérose, sclérose pulmonaire, jusqu'aux cancers, ...).

Les zones rouges de ces deux PET scans représentent une forte concentration de récepteurs dopaminergiques.
L'addiction est un phénomène très puissant car elle est déterminée par la partie basse du cerveau c-à-d la plus archaïque, siège des actes inconscients, réflexes de protection et instincts de survie. On est donc au-delà de ce qui est contrôlable par la volonté consciente.
Notons enfin que l'on peut fumer pour d'autre raisons que le plaisir, mais cela relève de la psychologie et plus de la biologie.
Écologie
2. Interactions
3. Énergie et matière
Organisation
Cette leçon est consacrée à la nomenclature des principales notions de l'écologie.
Les sphères biotique (ensemble des éléments vivants dans une même région : animaux, plantes, champignons, bactéries, ...) et abiotique (ensemble du non-vivant : la lumière, l'eau, l'air, le sol, les minéraux, la température, ...) interagissent constamment :
l'eau est consommée par les organismes vivants ;
des espèces vivantes modifient la structure du sol à certains endroits ;
- etc.
Ces interactions sont très complexes, c'est pourquoi leur étude requiert d'identifier différents niveaux d'organisation du vivant : individu < population < communauté < écosystème < biome < biosphère.
L'individu. Organisme vivant considéré isolément et qui peut être étudié dans son intégralité. Il s'agit d'une unité fonctionnelle, qui naît, se développe, interagit avec son environnement, se reproduit, puis meurt. Un individu est caractérisé par :
- sa morphologie ;
- son comportement (avec les autres individus ainsi qu'avec son environnement) ;
- ses besoins (température, humidité, ...).
La population. Ensemble d'individus d'une même espèce, vivant dans un même lieu au même moment, et capables de se reproduire (fécondité). Une population est caractérisée par :
- sa densité (nombre d'individus par unité de surface, taille, ...) ;
- sa dynamique (taux de natalité, taux de migration, ...) ;
- sa structure (âge moyen, distribution spatiale, ...).
Une condition nécessaire (mais non suffisante) pour qu'un individu soit considéré comme appartenant à une population de son espèce est qu'il soit génétiquement capable de s'y reproduire.
En l'absence de prédation, les populations animales ont tendance à croître plus vite que les ressources disponibles ⇒ surpopulation. Des systèmes naturels de régulation des populations neutralisent généralement ce phénomène.
La communauté. Ensemble de toutes les populations d'espèces différentes (végétales, animales, ...) coexistant dans un même lieu. Une communauté est caractérisée par divers types d'interactions entre ses populations :
- prédation ;
- mutualisme ;
- compétition.
Au sein d'une communauté, il peut arriver qu'une seule espèce influence de façon déterminante l'équilibre du milieu, c'est l'espèce « clé de voûte ».
L'écosystème. Un écosystème est composé d'une sphère biotique également appelée biocénose, et d'une sphère abiotique également appelée biotope dont les caractéristiques physico-chimiques peuvent limiter la survie d'une espèce dans un lieu donné. Un écosystème est caractérisé par :
- ses flux d'énergie ;
- ses cycles de matière (carbone, azote, ...) ;
- un équilibre dynamique (entre les différentes espèces).
Un écosystème peut être de très petite taille, à l'instar d'un étang ou même d'un aquarium (écosystème artificiel).
Le biome. Ensemble d'écosystèmes similaires par leur climat, leur végétation dominante et leurs espèces adaptées. Un biome est donc caractérisé par :
- un climat (précipitations, températures, ...) ;
- une végétation.
Ainsi un biome de type "désert" est très différent d'un biome de type forêt. Il y en a bien d'autres : savane, toundra, océans, récifs, mers, estuaires, etc. Le plus large de tous les biomes est la biosphère, ensemble des écosystèmes et des biomes.
La biosphère. Sommet de l'échelle d'organisation, elle englobe l'ensemble des biomes et écosystèmes sur une épaisseur d'environ vingt kilomètres. Elle s'étend à travers l'atmosphère (couche gazeuse), l'hydrosphère (couche liquide) et la lithosphère (croûte terrestre).
Si la terre avait la taille d'un oignion, la biosphère aurait l'épaisseur de la mince pellicule/pelure qui entoure l'oignon.
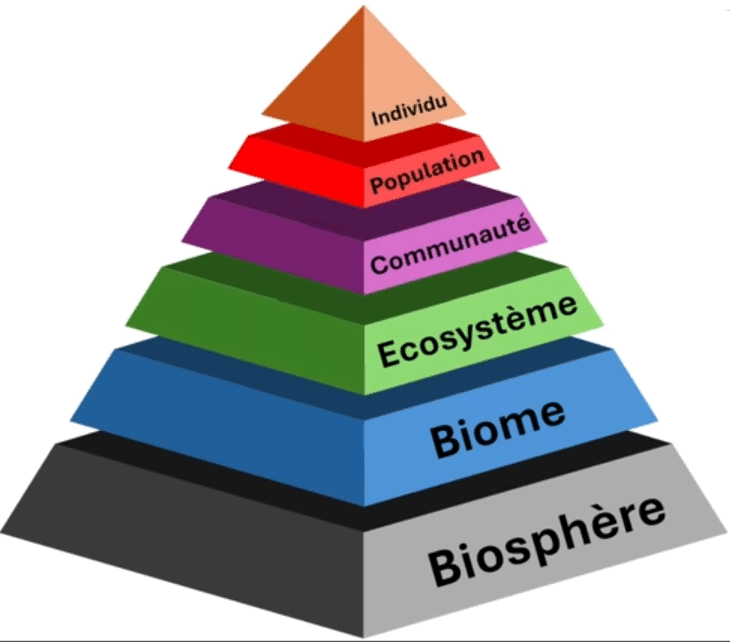
La biosphère est composée de différents biomes, composés de certains écosystèmes dans lesquels on retrouve des communautés de populations de mêmes individus, qui interagissent.
mais résilient
Quand l'équilibre d'une seule de ces couches est modifié – suite à une modification quantitative/qualitative substantielle d'un élément clé de la biocénose (par exemple une espèce clé de voûte) ou du biotope (par exemple la couverture nuageuse suite à l'impact d'une météorite géante) –, l'impact sur l'ensemble de la biosphère peut être important, au niveau de sa structure ou de son fonctionnement.
On parle alors de perturbation écologique, par rapport à une situation d'équilibre. Heureusement la capacité de résilience de chacun des composants de la biosphère ramène celle-ci vers une situation d'équilibre, après une période dont la longueur est généralement proportionnelle à l'ampleur de la perturbation :
les perturbations écologiques peuvent être naturelles (incendies de forêt causés par une éruption volcanique, inondations suite à des crues, etc) ou anthropiques (pollutions intenses, déforestation, etc.), et entraînent systématiquement une perte de biodiversité (animale et végétale).
N.d.A. Les termes « désastre » et « catastrophe » utilisés dans la vidéo ne sont pas des concepts d'écologie académique. C'est un terme anthropocentré, émotionnel et médiatique, utilisé lorsque les conséquences d'un événement (qu'il soit naturel comme un séisme ou anthropique comme une marée noire) impactent l'économie, la sécurité ou la sensibilité humaines.
ces perturbations sont systématiquement suivis d'une période de reconstruction, phénomène appelé résilience, qui est la capacité à absorber une perturbation et à retrouver un état de fonctionnement stable. On distingue la résilience forte (rapide) vs faible (lente, vers un équilibre différent du précédent, par exemple une végétation mieux adaptée après de fréquents incendies de forêt).
La résilience est déterminée par l'ampleur et la fréquence des perturbations. Ainsi l'activité humaine est à haute fréquence et d'ampleur démesurée, en comparaison avec la plupart des perturbations naturelles.
En 1995 le loup gris a été réintroduit dans le parc de Yellowstone qui était fort perturbé par la surpopulation des wapitis qui broutaient excessivement les arbustes et arbres localisés aux abords des rivières. En chassant les wapitis, les loups ont permis la repousse de la végétation, provoquant ainsi le retour des castors, qui par leurs barrages ont utilement modifié la bio-scène (notamment en modifiant les cours d'eau). Les loups sont ici un cas d'espèce pivot évoqué plus haut : une population de loup relativement limitée a pu avoir un impact considérable sur l'écosystème du parc Yellowstone.
Si la réinsertion (concertée) du loup dans le parc Yellowstone fut positive, celle (non concertée) du lapin en Australie fut cependant un désastre.
La biosphère est un système certes solide, mais pas indestructible. Protéger la biodiversité, c'est donc protéger les équilibres dont nous dépendons.
Exercice : recomposer la pyramide supra dans le cas du vers de terre, de l'abeille, puis de la baleine.
Interactions
Dans cette leçon nous étudions spécifiquement le niveau "Écosystème" de la pyramide des niveaux d'organisation du vivant, et en particulier des interactions entre les individus.
La biosphère est composée de différents biomes, composés de certains écosystèmes dans lesquels on retrouve des communautés de populations de mêmes individus, qui interagissent.
Les interactions entre les individus sont fondamentales car elles influencent :
- la survie des espèces ;
- leur répartition ;
- l'équilibre des écosystèmes.
Fait fondamental : les interactions structurent toute la biosphère.
On distingue deux grands types d'interactions : intraspécifiques vs interspécifiques.
intraspécifiques
Ce sont les interactions entre deux membres d'une même espèce (donc capables de se reproduire entre eux).
Elles peuvent être de deux types ;
- positives : par exemple la coopération pour :
- chasser ;
- se défendre ;
- élever les jeunes.
La coopération augmente les chances de survie de chaque individu et de leur groupe.
- négatives : par exemple la compétition pour les ressources :
- partenaires de reproduction ;
- territoire ;
- nourriture.
interspécifiques
Ce sont les interactions entre deux espèces différentes (donc incapables de se reproduire entre elles).
Les interactions possibles entre deux espèces A et B sont de trois types possibles :
- Bénéfiques (+)
- neutres (0)
- défavorables (-)
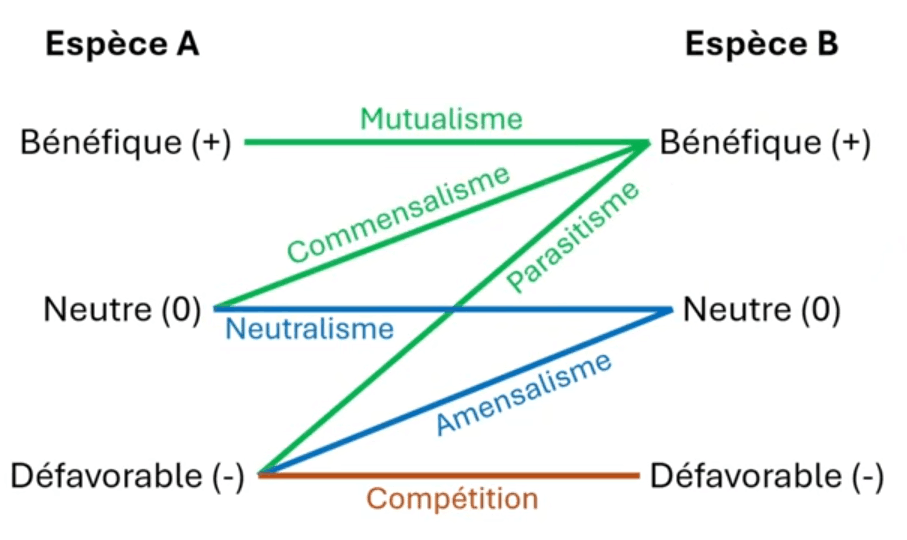
On peut alors distinguer diverses combinaisons :
- mutualisme : bénéfique aux deux espèces ;
- exemple : abeille et fleur.
- commensalisme : bénéfique pour l'une, neutre pour l'autre ;
- exemple : remora et requin.
- parasitisme : bénéfique pour l'une, défavorable pour l'autre ;
- exemple : tique et humain.
- prédation : bénéfique pour l'une, défavorable pour l'autre ;
- exemple : lion et zèbre.
La prédation est une interaction +/-, tout comme le parasitisme, mais avec cette différence que la prédation provoque la mort immédiate de la victime.
- neutralisme : neutre pour les deux espèces ;
- exemple : bouquetin et marmotte.
- amensalisme : défavorable pour l'une, neutre pour l'autre ;
- exemple : coléoptère de buisson et bouquetin.
- compétition : défavorable aux deux espèces.
- exemple : renard et hiboux.
N.B. On observe également ces interactions au niveau intraspécifique.
Exercice. Pour chaque sous-type d'interactions, identifier un exemple d'interaction :
- intraspécifique, pour l'espèce "humains";
- interspécifique, entre les espèces "humains" et "abeilles".
Énergie et matière
Dans cette vidéo fondamentale, nous explorons les moteurs de la biosphère : l'énergie et la matière. Nous découvrirons une règle d'or en écologie : l'énergie traverse le vivant et se dissipe, tandis que la matière, elle, se recycle indéfiniment.
Pour ce faire, nous aborderons les thèmes suivants :
Dynamique énergie vs matière : l'énergie circule à sens unique (du Soleil vers les décomposeurs), alors que la matière reste constante et cyclique.
Réseau trophique : composé de deux types d'acteurs : producteurs autotrophes (plantes, algues et certaines bactéries) vs consommateurs hétérotrophes (primaires, secondaires et tertiaires, comme la chenille, la poule et le renard), dont les décomposeurs, organismes hétérotrophes (champignons et bactéries) qui ferment la boucle en dégradant la matière organique.
Enveloppes de la Terre : biosphère, atmosphère, lithosphère, hydrosphère. Il s'agit donc en quelque sorte de l'anatomie planétaire.
Cycles biogéochimiques : cycle du carbone, cycle de l'eau, cycle de l'azote.
Énergie/Matière
Nous étudions ici la dynamique énergie-matière dans le réseau trophique :
- qui consomme quoi ?
- comment la matière est-elle subséquemment recyclée ?
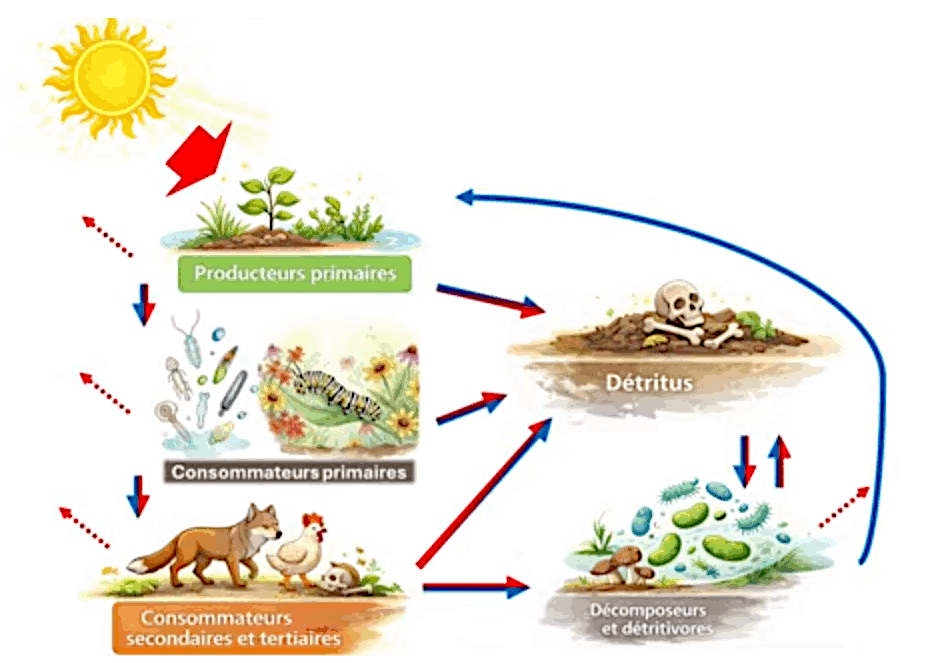
• Flèches bleues : flux de matière
• Flèches rouges : flux d'énergie (dissipation si pointillés)
Le Soleil est ici la source d'énergie de tout le réseau. Sa lumière est utilisée par les producteurs primaires (essentiellement plantes et phytoplanctons), pour produire, à partir de matière inorganique (essentiellement CO2 et H2O), leur propre matière organique.
Ensuite les producteurs primaires sont consommés par des consommateurs primaires, qui :
- assimilent la matière dont les producteurs primaires sont composés ;
- dissipent de l'énergie sous forme de chaleur, non recyclée.
Et ainsi de suite : consommateurs primaires consommés par les consommateurs secondaires, à leur tour consommés par les consommateurs tertiaires. Et à chaque étape, il y a dissipation d'énergie (énergie non recyclée).
Producteurs et consommateurs génèrent tous des détritus, qui seront décomposés par des décomposeurs et des détrivores qui réduisent ainsi la matière organique en matière inorganique simple, qui va ainsi pouvoir être réutilisée par les producteurs primaires. Et ainsi le cycle se referme !
En raison du phénomène de dissipation, seulement 10 % de l'énergie d'une partie d'un réseau trophique est transférée à la suivante, il y donc d'importantes pertes d'énergies lors de ces transferts.
trophique
Un réseau trophique est composé notamment de deux types d'acteurs : les producteurs et les consommateurs (dont les décomposeurs).
Les producteurs (plantes, phytoplanctons ou certaines bactéries) sont autotrophes, généralement par le processus de photosynthèse (ils sont alors dits "photosynthétiques") : à partir de l'énergie du Soleil, ils produisent leur matière, généralement à partir de matière inorganique (essentiellement CO2 et H2O), ce qui leur permet de croître. Ils constituent ainsi la base de tout écosystème.
Les consommateurs sont eux hétérotrophes : les animaux ainsi que certains champignons et certaines bactéries ont besoin de molécules organiques déjà existantes pour produire l'énergie nécessaire à leur fonctionnement et fabriquer leur propre matière :
les consommateurs primaires tels que les sauterelles et les chenilles se nourrissent de producteurs ;
les consommateurs secondaires tels que les poules se nourrissent de consommateurs primaires ;
les consommateurs tertiaires tels que les renards se nourrissent de consommateurs secondaires.
Tous les consommateurs génèrent des déchets, dont leurs corps une fois décédés. Ces déchets sont décomposés par des décomposeurs (également hétérotrophes) en matières plus simples pouvant être réutilisées par les producteurs. Ces décomposeurs sont généralement des bactéries ou des champignons.
Champignons de l'atmosphère et bactéries de la lithosphère.
Le schéma suivant illustre la complexité du réseau trophique :
à l'extrême droite, une chaîne complète : herbe < sauterelle < oiseau < serpent < aigle ;
à gauche, l'herbe est également consommée par la souris et le lapin, qui sont tous deux chassés par des consommateurs secondaires ou tertiaires.
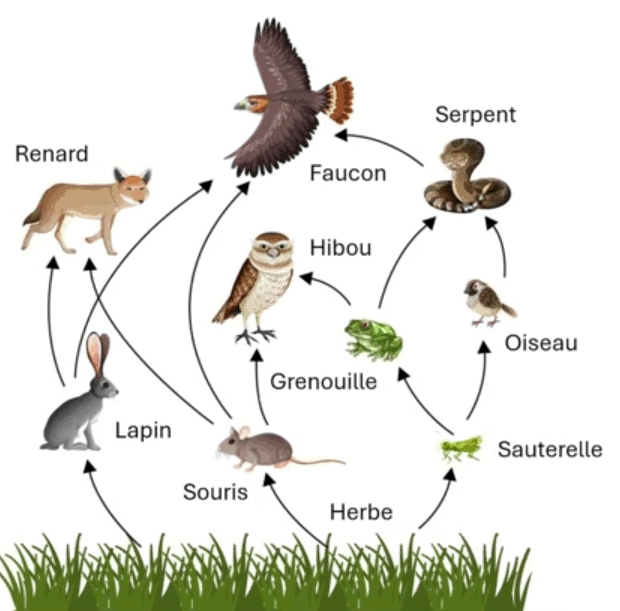
de la Terre
On va parler ici plus spécifiquement de la matière, via le principe de la biosphère. Nous avons vu dans #ecologie-organisation que la biosphère est la couche planétaire où toute la vie existe. On y distingue les régions suivantes :
l'hydrosphère : aquatique, caractérisée notamment par le phénomène d'évaporation ;
- la lithosphère : sous le sol, caractérisée notamment par le phénomène de décomposition ;
- l'atmosphère : tout ce qui est à la surface, caractérisée notamment par le phénomène de photosynthèse.
Tous ces éléments sont inter-mélangés, via les cycles biogéochimiques.
biogéochimiques
On distingue trois cycles biogéochimiques : cycle du carbone, cycle de l'eau, cycle de l'azote.
Le cycle du carbone est caractérisé par des passages entre parties de la biosphère. Ainsi pour la combustion du charbon, on passe de la lithosphère vers l'atmosphère.
De gauche à droite dans l'illustration infra :
la photosynthèse transforme des molécules inorganiques en molécules organiques. Après leur mort, ces dernières peuvent être transformées en énergie fossile (fossilisation, échelle de temps géologique).
la combustion, de la biosphère vers l'atmosphère ;
la combustion "volcanique", de la lithosphère vers l'atmosphère ;
la respiration, de la biosphère vers l'atmosphère ;
la combustion industrielle, qui reproduit (et augmente ...) les deux types de combustion naturelle ci-dessus ;
la sédimentation, de l'atmosphère vers la lithosphère et (plus souvent) de l'hydrosphère vers la lithosphère (lorsque les organismes morts se déposent sur les fonds marins et s'y décomposent).
Des processus de régulation maintiennent un équilibre : par exemple la combustion du bois transforme celui-ci en CO2, lequel est retransformé en matière par la photosynthèse.
Ce processus d'auto-régulation pourrait être neutralisé si l'activité humaine produisant du CO2 et réduisant les forêts dépasse un certain seuil (N.d.A. Les végétaux terrestres réalisent 25% de la photosynthèse, la majorité étant le fait des océans).
Le cycle de l'azote est nettement plus complexe. Pour le décrire, partons de l'azote atmosphérique (au sommet de l'illustration suivante), car c'est dans l'atmosphère que situe la majeure partie de l'azote terrestre.
L'azote atmosphérique est fixé par certaines bactéries (par exemple celles vivant à proximité des légumineuses dont elles captent les glucides en échange de l'azote qu'elles récupèrent dans l'air ambiant). Ces bactéries fixatrices d'azote transforment l'azote fixé en ammonium, qui sera à son tour transformé en nitrite par d'autres bactéries dites nitrifiantes (réaction chimique de nitritation), qui transforment ensuite ces nitrites en nitrates (réaction chimique de nitratation). Ces nitrates pourront soit être directement assimilés par les plantes, soit être retransformés en azote par des bactéries dites dénitrifiantes. On a ainsi un cycle de la matière, fermé, qui recycle l'azote en permanence.
Flèches bleues : les acteurs sont donc les plantes, les animaux et les décomposeurs bactériens, qui se mangent les uns les autres et produisent ainsi, via les excréments et la décomposition des cadavres, de l'ammonium. Celui-ci sera transformé en nitrites, etc., en s'insérant dans le cycle de l'azote.
Enfin le cycle de l'eau commence par l'évaporation de l'eau des océans et l'évapotranspiration de la matière organique vivant dans l'atmosphère. Cette eau se retrouve dans l'atmosphère où elle se condense sous forme de nuages. Ceux-ci, en changeant d'altitude, se densifient jusqu'à précipiter, sous forme d'eau, de grêle ou de neige. Ces précipitations génèrent de l'eau qui va ruisseler vers les fleuves et nappes phréatiques ou directement vers les océans. Ce cycle complet, qui recycle l'eau, favorise ainsi la permanence d'eau dans une même région.
Plein écran : F11 (idem retour)

